

Надо подкачаться: молекулярные механизмы мышечной гипертрофии
26 октября 2026
Надо подкачаться: молекулярные механизмы мышечной гипертрофии

Рисунок в полном размере.
иллюстрация Умы Грачевой
-
Автор
-
Редакторы


Статья на конкурс «Био/Мол/Текст»: В наше время уже большинству известно, что для того, чтобы создать тело своей мечты, необходима регулярная физическая нагрузка, в идеале — силовые тренировки. Однако вы когда-нибудь задумывались, почему от того, что вы раз в несколько дней поднимаете гантель, ваши бицепсы и трицепсы становятся больше? Какие каскады и механизмы являются этому причиной? И кто же «главный герой» всех этих каскадов? Давайте рассмотрим самые популярные объяснения механизмов гипертрофии для того, чтобы ответить на эти вопросы.
Конкурс «Био/Мол/Текст»-2026/2027
Эта работа опубликована в номинации «Школьная» конкурса «Био/Мол/Текст»-2026/2027.
Генеральный партнер конкурса — международная инновационная биотехнологическая компания BIOCAD.
Партнер номинации — Центральный университет —, российский вуз нового типа, внедряющий STEM-подход (Science, Technology, Engineering, and Mathematics) в высшее образование.
«Книжный» спонсор конкурса — «Альпина нон-фикшн»
«Чтобы иметь дьявольскую силу, ты и пахать должен как демон.» — Арнольд Шварценеггер, бодибилдер, актер, семикратный победитель «Мистер Олимпия»
Анатомия, физиология и биохимия мышц «на пальцах»
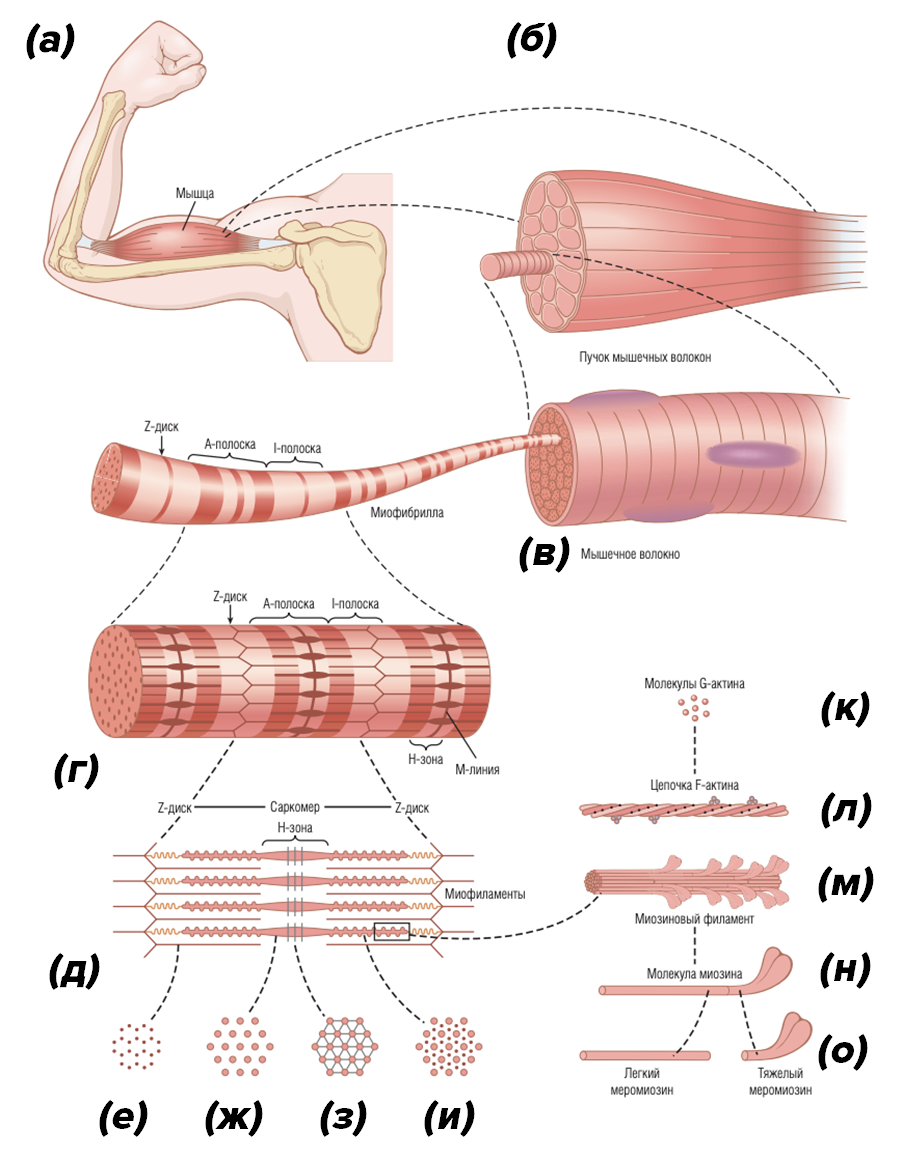
Рисунок 1. Строение мышц. (а) — схематичное изображение мышцы в человеческой руке; (б) — пучок мышечных волокон (клеток, составляющих мышцу); (в) — отдельное мышечное волокно, в котором можно увидеть большое количество миофибрилл; (г) — миофибрилла. На рисунке подписаны различные зоны миофибриллы, которые являются белками актин-миозинового комплекса, образующими особый узор. (д) — саркомер. Справа и слева его ограничивают Z-диски. Можно увидеть отходящие от них актиновые филаменты. Между ними миозиновые филаменты, которые крепятся к Z-диску через титин. (е–и) — различные зоны саркомера в поперечном срезе. (к–о) — более подробное изображение белков актин-миозинового комплекса.
Для того, чтобы разобраться в молекулярных каскадах и механизмах, необходимо начать с самых основ.
Скелетные мышцы состоят из очень длинных многоядерных клеток — мышечных волокон (рис. 1в) , а также сателлитных клеток: стволовых клеток мышц, которые при необходимости могут делиться и создавать новые мышечные волокна. Каждое мышечное волокно, в свою очередь, содержит миофибриллы (рис. 1г) — структуры, содержащие сократительные белки, так называемый актин-миозиновый комплекс. Саркомер (рис. 1д) — это мельчайшая единица, входящая в состав миофибрилл; границами ее служат Z-диски. От них отходят тонкие актиновые филаменты. Между актиновыми филаментами к Z-диску через белок титин крепятся толстые молекулы миозина.
Во время сокращения толстые молекулы миозина входят между тонкими молекулами актина, за счет чего происходит уменьшение длины мышцы и соответствующее движение [1].
Теперь о биохимии. Для мышечных сокращений используется в первую очередь глюкоза. Для понимания тем, о которых дальше пойдет речь в статье, необходимо знать следующее (рис. 2):
- Глюкоза может окисляться без использования кислорода до пирувата, что уже дает немного энергии в виде молекул АТФ (аденозинтрифосфата). Во время этого процесса из кофермента НАД+ образуется НАДН: молекула-переносчик электронов, важная для получения энергии.
- Если кислорода мало, тогда пируват превращается в лактат (так происходит в обычных клетках, однако, как мы узнаем, позже, в мышцах все работает немного иначе!). Это нужно для того, чтобы восстановить концентрацию НАД+.
- Если кислорода достаточно, тогда пируват поступает в митохондрии и входит в цикл Кребса, из которого выходит в виде молекул CO2 и НАДН.
- Электроны и протоны с НАДН уходят в электрон-транспортную цепь, представляющую собой несколько типов белков во внутренней мембране митохондрий, где за счет энергии электронов образуется АТФ, а сами электроны поступают на О2, в результате чего образуются две молекулы воды.
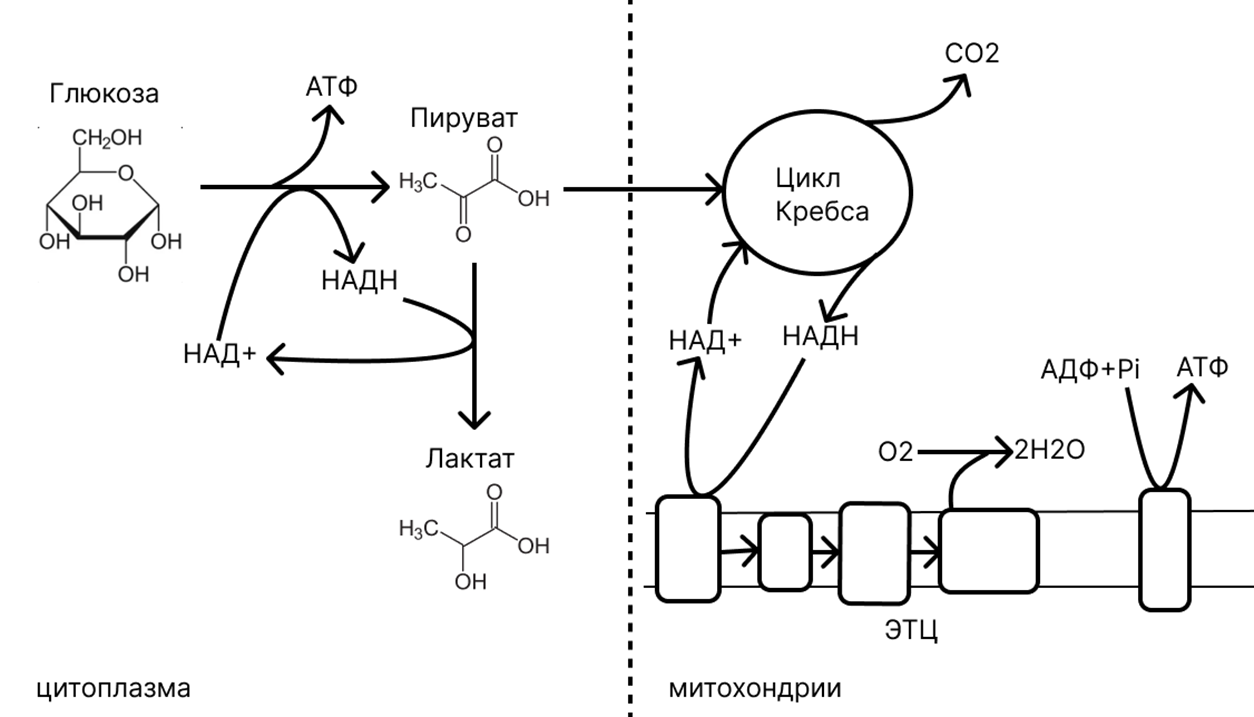
Рисунок 2. Схема катаболизма глюкозы. Пояснения в тексте.
рисунок создан в Figma
Во время мышечного сокращения в мышце происходит огромное количество биохимических реакций, протекает множество процессов. На данный момент мы не располагаем достаточно достоверной информацией о том, насколько одни каскады активируются лучше, чем другие. Проще говоря, сейчас мы не можем точно сказать, какой из «активаторов» гипертрофии мышц является самым главным. Именно поэтому в этой статье нашей задачей будет найти ту самую «бутылку с посланием», которая когда-то была брошена в океан науки, чтобы понять: что (наиболее вероятно) является причиной гипертрофии?
Что такое гипертрофия мышц?
Гипертрофия мышц — увеличение объема и массы мышцы. Интересно, что гипертрофия мышц человека вызывается в большей степени увеличением объема, а не количества мышечных волокон [2]. Также доказано, что физические упражнения с отягощением, то есть с добавлением какого-либо веса, являются лучшим немедикаментозным способом достижения гипертрофии [3].
Из вышеизложенного можно сделать вывод, что нужный нам биохимический каскад, который ведет к гипертрофии мышц, должен соответствовать двум условиям:
- каким-либо образом усиливать синтез белка;
- активироваться вследствие физической нагрузки.
И такие пути есть! Давайте сначала рассмотрим наиболее достоверные и изученные пути, а в конце обсудим наименее влиятельные, однако известные факторы гипертрофии.
Механический стресс
Давайте сразу поговорим о том, что может возникнуть исключительно во время силовой тренировки. Речь идет о механическом воздействии на мышцу. Каким образом мышца «понимает», что вы поднимаете большой вес и нужно усиливать синтез сократительных белков?
Костамеры
Костамеры — особые белковые комплексы, связывающие внеклеточный матрикс c элементами саркомера: Z-дисками и актиновыми филаментами. Костамеры способны передавать усилия как от саркомера к внеклеточному матриксу, так и наоборот. В контексте нашей статьи это говорит о том, что именно через костамеры мышечные волокна могут «понимать», насколько сильное напряжение испытывает мышца во время физической нагрузки.
Костамеры состоят из винкулин-талин-интегринового и дистрофин-гликопротеинового комплекса (рис. 3). В состав первого входит киназа фокальной адгезии (FAK) [4] — важный белок пути, ведущего к гипертрофии. Также FAK имеет цитозольную форму [5].
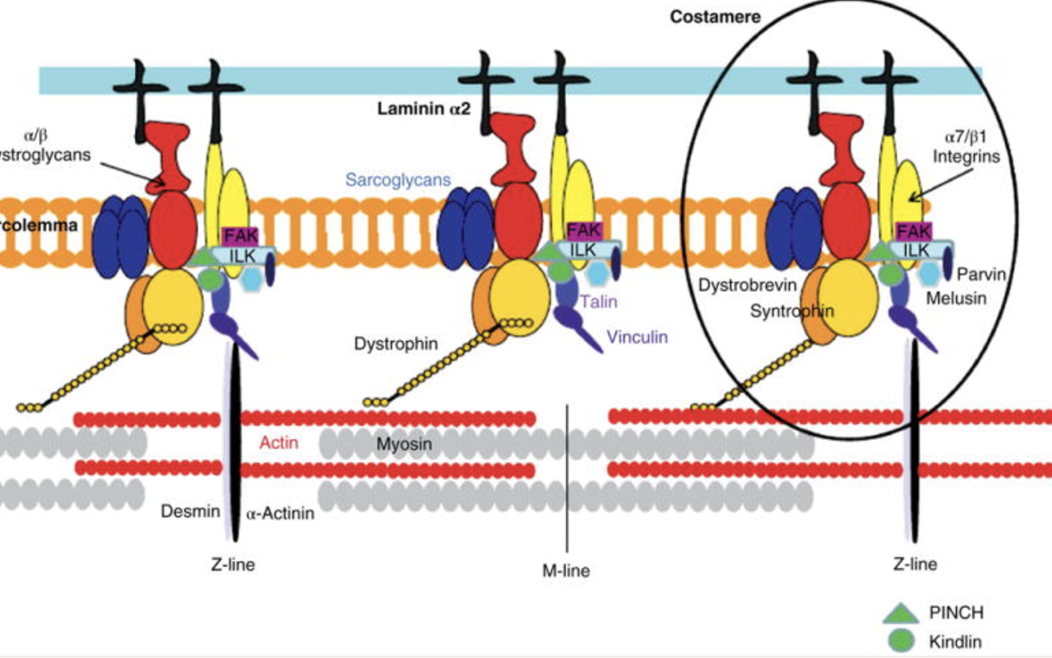
Рисунок 3. Схематичное изображение костамеров. В нижней половине рисунка схематично показаны саркомеры, сверху изображены костамеры.
Костамер можно условно разделить на две половины: правую — винкулин-талин-интегриновый комплекс, который связан с Z-диском; в нем можно увидеть FAK; и левую половину — дистрофин-гликопротеиновый комплекс, который связан с актиновыми филаментами.
Также следует упомянуть, что рядом с костамерами в мембране располагается фермент, синтезирующий особый тип фосфолипидов, которые обозначают как PIP2 [6]. Их высокая концентрация вокруг костамера будет важна для нас в дальнейшем обсуждении активации FAK.
FAK
FAK имеет по-настоящему необычный путь активации (рис. 4).
- Цитозольная форма связывается с костамерной, образуя димер.
- FAK может связываться с PIP2. Вследствие связывания с PIP2 каждая из FAK меняет свою конформацию. Теперь происходит аутофосфорилирование, то есть FAK фосфорилируют сами себя.
- Димер FAK связан с актиновыми филаментами через ряд белков. Во время сокращения FAK раскрываются еще сильнее, открывая домен, который фосфорилирует киназа Src. Теперь FAK полностью активирована [5].
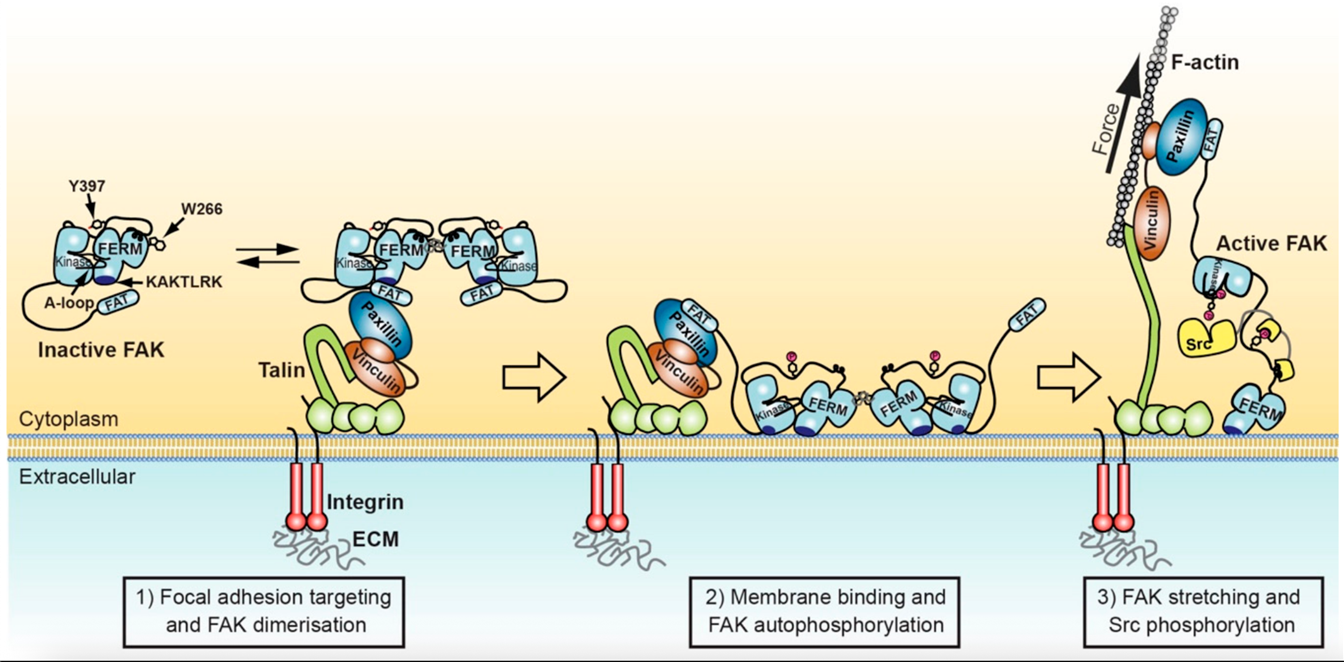
Рисунок 4. Путь активации FAK.
В дальнейшем FAK активирует mTORC1 за счет деактивации его ингибиторов [6]. Запомните mTORC1: это важнейший комплекс белков, связанный с гипертрофией! Подробнее мы его обсудим далее.
Также следует упомянуть, что Src, помимо активации FAK, ингибирует AMPK [7]. Эта протеинкиназа реагирует на низкий уровень АТФ и активирует расщепление белков, а также ингибирует mTORC1 [8]. Таким образом, разрушения белков не происходит, если понижение уровня АТФ вызвано физической нагрузкой, а не, к примеру, голоданием.
Также в мышцах есть и другие пути гипертрофии, которые могут активироваться за счет механического стресса, например, такие, как путь Hippo или TGFβ/Smad [9], однако эти пути либо все еще недостаточно изучены, либо слишком сложны для включения в эту статью.
Метаболический стресс
Во время интенсивной нагрузки, такой как силовые упражнения, в мышцах может возникать метаболический стресс [10]. Под метаболическим стрессом понимают ряд факторов, таких как гипоксия, образование активных форм кислорода, закисление среды, а также увеличение концентрации лактата.
Необычная роль лактата
В ряде исследований продемонстрировали, что повышение концентрации лактата в мышцах происходит даже при окислении НАДН в электронно-транспортной цепи, то есть в тех условиях, когда кислорода достаточно для образования АТФ в митохондриях [11], [12]. Значит, лактат в мышцах несет иную функцию. Как бы удивительно это ни было, но образование молочной кислоты, нужно для того, чтобы сделать среду более щелочной [13]! После такого утверждения точно нужны пояснения.
Давайте рассмотрим реакцию образования лактата (рис. 5).
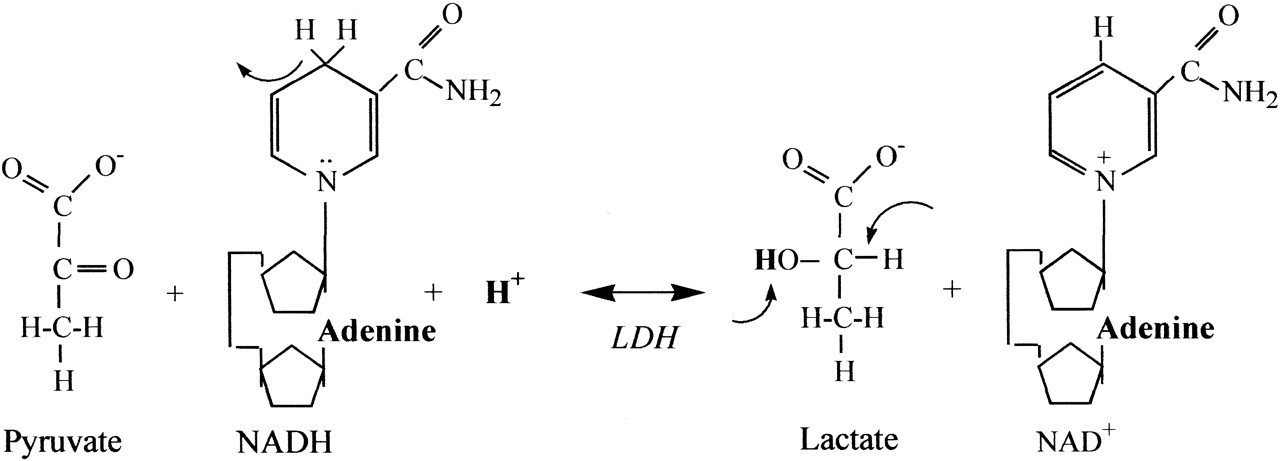
Рисунок 5. Реакция образования лактата.
Как мы видим, во время этой реакции используется протон, который берется прямо из цитозоля. Таким образом, эта реакция понижает концентрацию протонов.
Однако все-таки во время физических нагрузок цитоплазма мышечных волокон становится более кислой [14]. Все дело в реакции гидролиза АТФ (рис. 6)
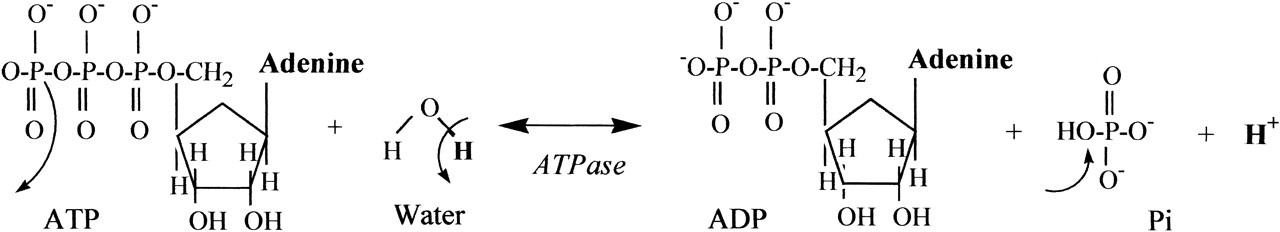
Рисунок 6. Гидролиз АТФ. При помощи фермента АТФазы вода разрывает связь между 2-ым и 3-им остатком фосфорной кислоты в АТФ. Один из водородов воды сразу же диссоциирует и не входит в состав ни АДФ, ни фосфата.
Как раз во время этой реакции выделяется протон! А таких реакций происходят десятки и сотни тысяч, так как именно они выделяют энергию, необходимую для сокращения мышцы.
К слову о низком pH: сейчас мы не имеем данных о его влиянии на гипертрофию, помимо повышения образования активных форм кислорода (см. далее).
Так, а какое же влияние самого лактата на гипертрофию?
- В одном из экспериментов была замечена корреляция уровня лактата с увеличением образования активных форм кислорода (см. далее) [15].
- При определенной концентрации лактата ингибируются ферменты гистондеацетилазы [16]. Если объяснять простым языком, эти ферменты делают так, что ДНК прикрепляется к специальным белкам: гистонам. Вследствие этого гены на прикрепленном участке ДНК становятся недоступными для экспрессии. Лактат же понижает активность этих ферментов, однако нельзя сказать точно, какую роль этот механизм играет в гипертрофии мышц.
- Повышение концентрации лактата коррелирует с повышением активации MAPK [17]: важного фактора, влияющего на образование новых мышечных волокон [18].
- Также после введения лактата у мышей повысилось фосфорилирование белков путей, связанных с Akt [17].
Первая встреча с Akt
Akt — это киназа, которая имеет множество белков среди своих субстратов (рис. 7).
Какие последствия активации Akt?
- Akt деактивирует белок GSK3β. Обычно GSK3β ингибирует фактор трансляции eIF2B, а также фактор транскрипции β-катенин. Таким образом, деактивация GSK3β позволяет работать факторам транскрипции и трансляции, усиливая синтез белка.
- Akt ингибирует действие протеинкиназы AMPK [19], которая упоминалась ранее.
- Akt деактивирует TSC1/TSC2, ингибитор mTORC1. Таким образом, мы снова встретились с этим комплексом [20]!
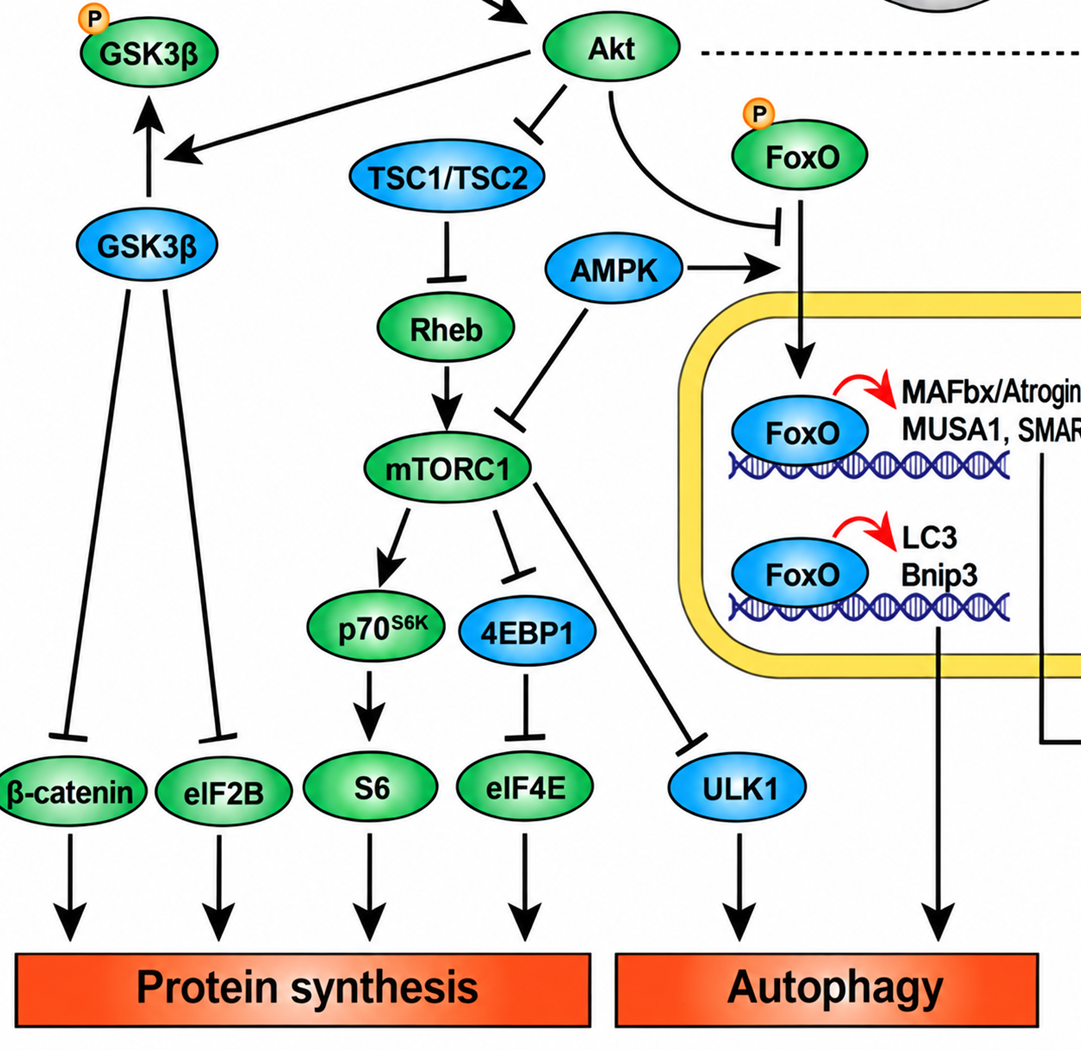
Рисунок 7. Схема влияния Akt на синтез белка. Зеленым цветом показаны ферменты, чья активность способствует синтезу белка. Синий цвет демонстрирует, что активность фермента приводит к аутофагии и/или подавлению синтеза белка.
фрагмент схемы из [19]; улучшено при помощи ChatGPT
Таким образом, можно высказать немало гипотез о непосредственном влиянии лактата на гипертрофию, однако эти пути еще недостаточно точно изучены на человеке, чтобы утверждать точно.
Активные формы кислорода
Активные формы кислорода (АФК) — это очень сильные окислители, содержащие в своем составе кислород. Их образование обычно очень опасно для клетки, поэтому часто организмы имеют различные методы защиты от них, начиная от нейтрализующих ферментов, таких как пероксидаза, и заканчивая отдельными компартментами в клетке, такими как пероксисомы, где изолированно происходят процессы, опасные образованием АФК.
Логично было бы предположить, что основной источник АФК в мышцах во время физической нагрузки — это электронно-транспортная цепь митохондрий, так как а) в ней происходит перенос электронов на кислород и б) на нее увеличивается нагрузка во время упражнений, значит, и образование АФК должно увеличиться? Однако, на удивление, есть данные о том, выработка АФК митохондриями ниже во время нагрузки, чем в состоянии покоя [21]! Что тогда является основным источником АФК?
Основное внимание следует уделить семейству белков НАДФН-оксидаз, а точнее, NOX2, трансмембранному белку, производящему супероксид-ион. NOX2 вносит наибольший вклад в образование АФК в мышечных волокнах [22]. Основной функцией этих ферментов является образование АФК при помощи НАДН, в связи с его высокой концентрацией в сокращающейся мышце [23]. Также, судя по всему, сродство NOX к НАДН повышается при пониженном рН [23].
Рассмотрим изученные механизмы образования АФК в мышцах согласно рисунку 8 [24].
1) Деполяризация мембран ⟶ активация трансмембранного NOX2.
2) Растяжение мышечных волокон ⟶ активация трансмембранного NOX2.
3) Сдвиг эндотелиальных клеток во время сокращения ⟶ активация эндотелиальной ксантиноксидазы, вырабатывающую АФК.
4 и 5) Белок PI3K, принимающий участие в пути Akt/mTORC1, а также белок PKC могут активировать NOX2.
6) НАДН(Ф)Н-хинон-оксидоредуктаза (NQO1), связанная с восстановлением концентрации НАД+, может активировать NOX2.
Теперь нужно, наконец, перейти к самому интересному: влиянию АФК на гипертрофию. И снова все сходится к пути Akt/mTORC1! АФК могут окислять ингибиторы Akt, таким образом активируя этот путь.
При этом сам Akt не меняет своей активности, если его окислить, так как в клетках присутствуют белки, восстанавливающие Akt после его взаимодействия с АФК [25]. Таким образом, АФК могут являться одним из важных факторов, поддерживающих путь Akt/mTORC1. После того, как мы уже не в первый раз встретились с mTORC1, наверняка у большинства возник вопрос...
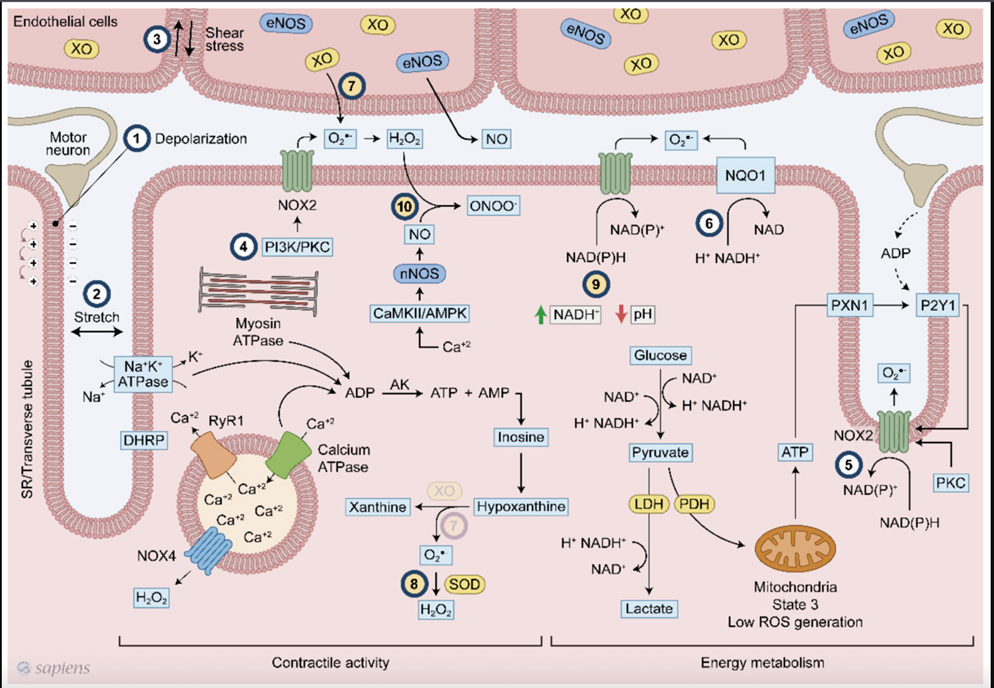
Рисунок 8. Разнообразие путей образования АФК. Изученные механизмы обозначены числами 1–6, гипотетические механизмы обозначены числами 7–10. Пояснения к изученным механизмам см. в тексте.
… Да кто такой этот ваш mTORC1?!
mTOR (mammalian target of rapamycin — мишень рапамицина у млекопитающих) — высококонсервативная серин/треониновая протеинкиназа. mTOR—это важнейший белок, регулирующий рост клеток. Он существует в двух комплексах: 1 и 2. В нашей статье речь пойдет о комплексе 1, или сокращенно mTORC1, так как именно к нему сводились пути, активируемые различными факторами, о которых говорилось выше.
Структура mTORC1
mTORC1 состоит из трех основных субъединиц: собственно mTOR, mLST8 и Raptor (рис. 9) [26]. mLST8 и Raptor регулируют доступ субстратов к активному центру комплекса (месту, где непосредственно происходит химическая реакция), максимально уменьшая проход для субстрата. При добавлении иммунодепрессанта рапамицина белок FKB12 может закрыть доступ к активному центру mTORC1 (рис. 9б), тем самым ингибируя его.
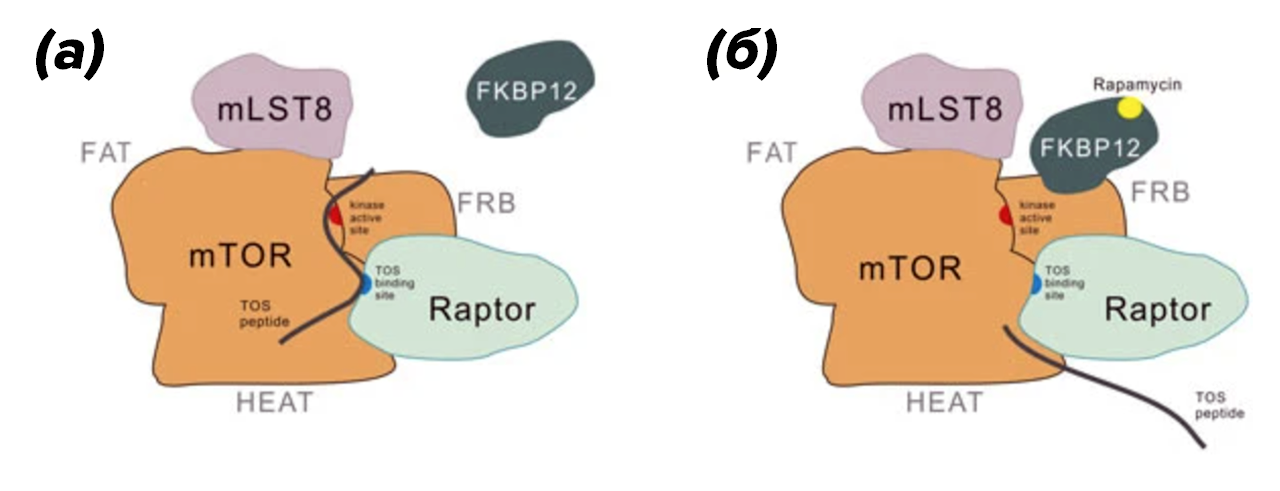
Рисунок 9. (а) — структура mTORC1; (б) — ингибирование mTORC1 при помощи FKB12, связанного с рапамицином.
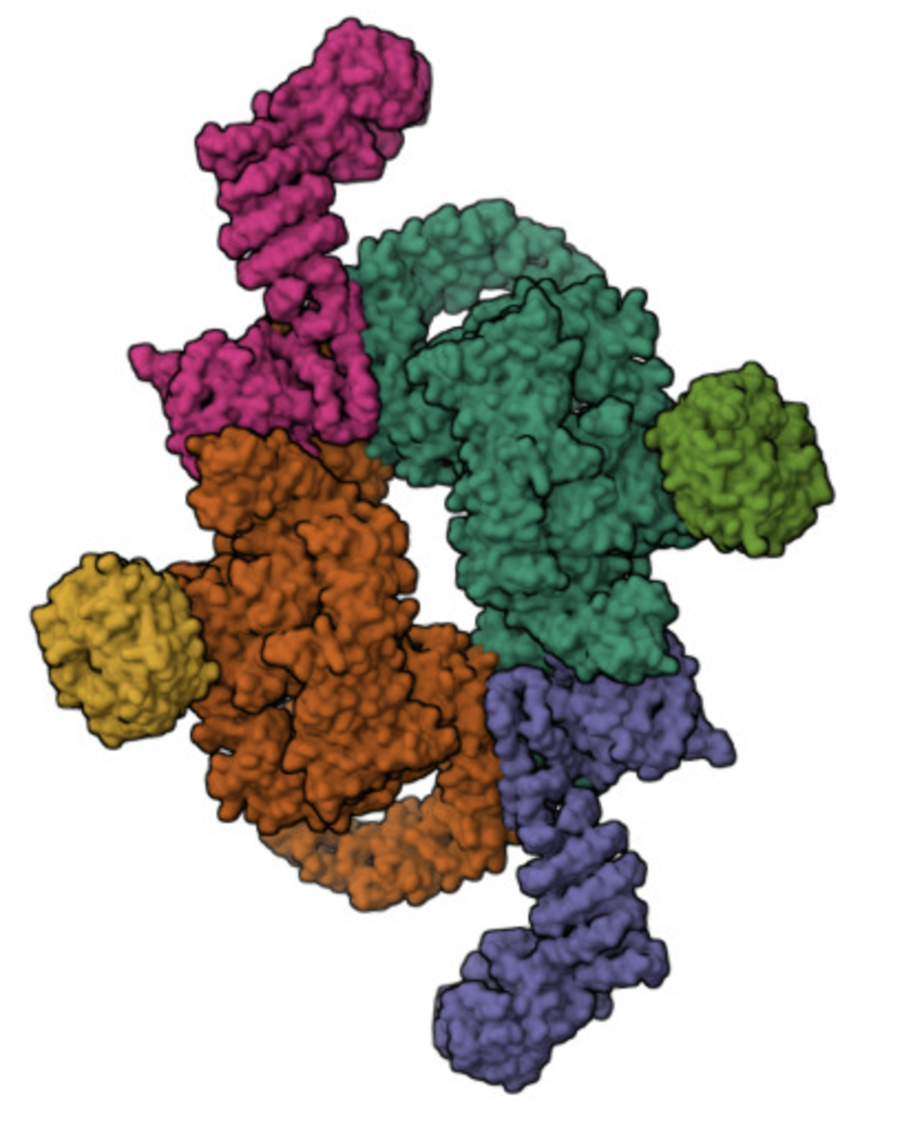
Рисунок 10. Более детальная структура mTORC1. Оранжевый и мятный цвет — mTOR, зеленый и желтый—LST8, фиолетовый и розовый — Raptor.
В клетке mTORC1 образует очень крупный димер — массой приблизительно 948,74 кДа (рис. 10) [27]. Для сравнения, первый фермент анаэробного пути окисления глюкозы весит в 9 раз меньше.
Субстраты mTORC1
На данный момент найдено 70 достоверных субстратов mTORC1 [28], [29]. Под «достоверными» имеется в виду, что мы точно знаем, что эти субстраты фосфорилирует именно сам mTORC1, а не какой-нибудь белок, лежащий ниже по пути mTORC1. Очевидно, мы не будем обсуждать все субстраты, а поговорим лишь о нескольких наиболее изученных.
p70S6K1
Рибосомная протеинкиназа S6 после своей активации при помощи mTORC1 фосфорилирует рибосомальный белок S6 [30]. В свою очередь, это приводит к активной трансляции матричных РНК, кодирующих рибосомальные белки и факторы трансляции.
4E-BP
Обычно 4Е-ВР связан с фактором eIF4E, который влияет на инициацию синтеза белка. После фосфорилирования 4E-BP отделяется от eIF4E, позволяя тому инициировать трансляцию, тем самым усиливая синтез белка в клетке [28].
ULK1
ULK1 входит в ULK, который приводит к аутофагии белков. Этот комплекс может быть активирован AMPK в случае низкого содержания АТФ. Однако если был активирован mTORC1, который фосфорилирует ULK1, то аутофагии белков не происходит [28].
TFEB
TFEB — фактор транскрипции, который при голодании перемещается в ядро и активирует гены, связанные с биогенезом лизосом, аутофагии белков и метаболизме липидов. mTORC1 фосфорилирует TFEB, заставляя того оставаться в цитозоле из-за удержания специальными белками [28].
Другие субстраты
Как уже говорилось выше, mTORC1 имеет множество субстратов. Среди них — факторы трансляции, транскрипции, аутофагии, транспортеры аминокислот и т.д. [28], [29]. Фосфорилирование каждого из них нацелено на увеличение количества белка в клетке, а если говорить конкретно о мышцах, то на увеличение количества сократительных белков, что и является причиной гипертрофии. Именно такое разнообразие субстратов придает mTORC1 особое место в путях, связанных с гипертрофией мышц вследствие физических нагрузок.
mTORC1 и старение
Доказано, что активация mTORC1 является одним из факторов старения, а ингибирование mTORC1 приводило к повышению продолжительности жизни всех модельных объектов, с которыми проводили эксперименты: от дрожжей до мышей [31]. Таким образом, это позволяет предположить, что повышенная активация mTORC1 может ускорять старение, что может быть причиной ухудшения здоровья профессиональных спортсменов в преклонном возрасте.
Однако, как известно, нормальная регулярная физическая нагрузка неоспоримо повышает продолжительность жизни как минимум на несколько лет [32], так что если вы будете качественно восстанавливаться, соблюдать режим сна и КБЖУ, будете избегать перетренированности, то спорт принесет вам только пользу.
А как же… ?
Читатель, который уже интересовался причинами гипертрофии, наверняка может припомнить пару факторов, о которых я не сказал выше. Давайте разберемся, почему они оказались именно в этом разделе.
Микроповреждения
Наверняка многие слышали что-то подобное: «боль — показатель хорошей тренировки». Правда ли это?
Микроповреждения (МП) — разрушение структуры белков саркомера, чаще всего Z-дисков и титина [33], под воздействием физической нагрузки. МП происходят чаще всего у нетренированных людей, либо у тех, у кого был большой перерыв между тренировками. Основная причина МП — это недостаток стабилизирующих белков цитоскелета, например, филамина C и десмина. Количество этих белков увеличивается за первые недели тренировок, в связи с чем уменьшается и количество микроповреждений.
После МП активируется механизм селективной аутофагии CASA. Этот механизм приводит к разрушению поврежденных белков и ингибированию mTORC1, для того, чтобы создать перевес в сторону аутофагии, а не синтеза белков. В связи с МП мышцы вынуждены тратить много ресурсов на замену поврежденных миофибрилл, а не на создание новых.
Проще говоря, в первые недели тренировок у мышц есть большой «налог на восстановление», который снижается с каждой тренировкой. Когда же этот «налог» становится достаточно маленьким, наступает эффект гипертрофии (рис. 11). При этом возможное увеличение мышц в первые недели тренировок скорее будет обусловлено отеком, а не синтезом новых миофибрилл.
Таким образом, микроповреждения не способствуют гипертрофии, а как раз наоборот, наибольший эффект гипертрофии достигается при минимальном количестве микроповреждений [34].
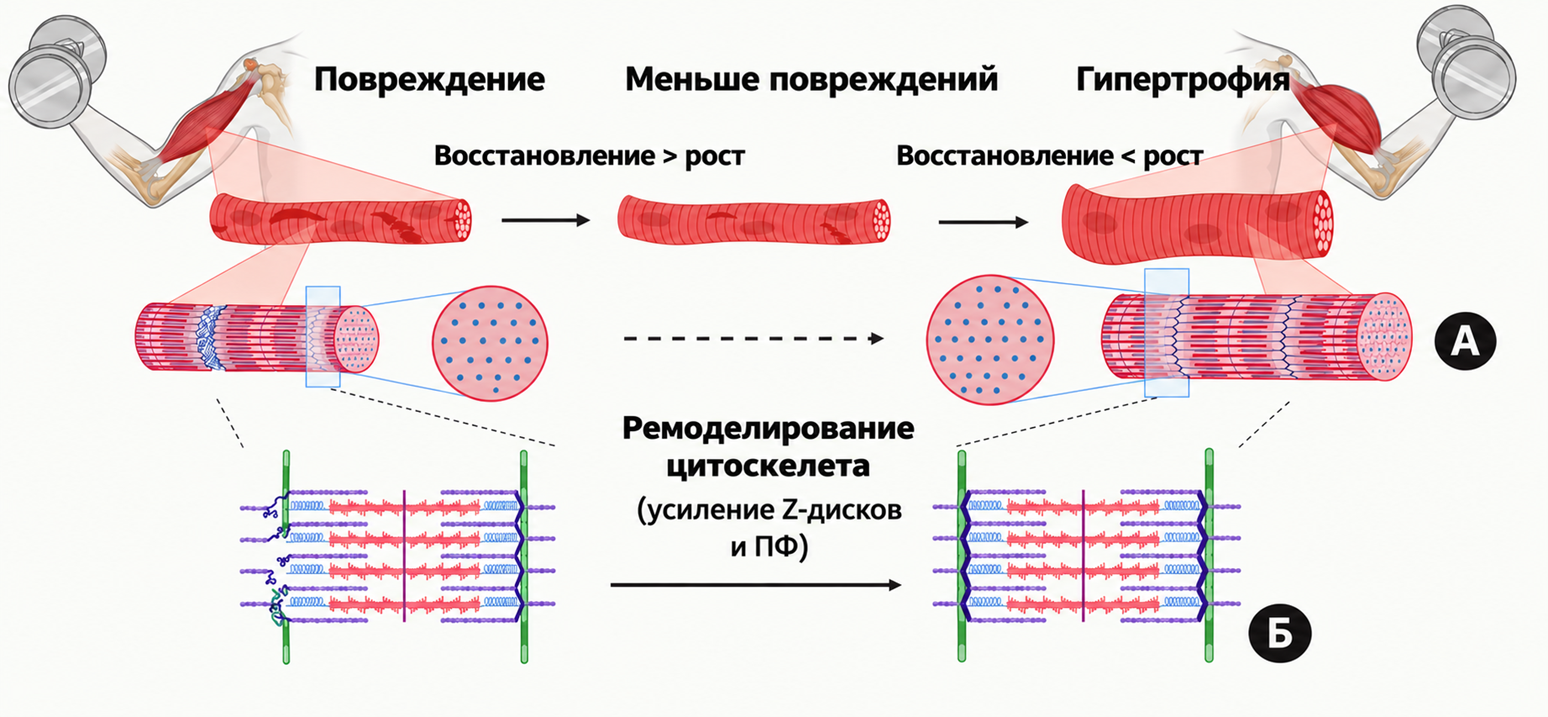
Рисунок 11. (а) — этапы адаптации к микроповреждениям. Вначале из-за обилия повреждений восстановление доминирует над ростом. С уменьшением количества повреждений начинает преобладать рост, происходит гипертрофия, увеличивается площадь поперечного сечения мышцы.
(б) — восстановление саркомера после микроповреждения.
ПФ — промежуточные филаменты
[33], переведено при помощи ChatGPT
Гормоны
Те, кто интересуются спортом и бодибилдингом, наверняка слышали об анаболических стероидах, которые принимают некоторые спортсмены для ускорения роста мышечной массы. По сути, анаболические стероиды являются синтетическом аналогом тестостерона. Из этого можно предположить: может быть, тестостерон и другие гормоны влияют на гипертрофию и во время обычной тренировки, без приема каких-либо препаратов?
После интенсивной физической нагрузки и правда может повышаться уровень таких гормонов, как инсулиноподобный фактор роста 1 (ИФР1) [1], а также тестостерон у мужчин [36] и женщин [37].
Однако, несмотря на наличие известных путей усиления синтеза белка, активируемых ИФР1 [19], были проведены исследования, в которых пришли к выводу, что всплеск гормонов не имеет большого влияния на синтез мышечного белка вследствие физической нагрузки [38].
Гипоксия
Гипоксия — это пониженное содержание кислорода в среде. Было проведено множество исследований, связанных с влиянием гипоксии на гипертрофию, по итогам которых масштабные метаанализы [38], [39] не показали особенную эффективность тренировок в условиях гипоксии на фоне тренировок в условиях нормального содержания кислорода.
Выводы
В данной статье мы познакомились с влиянием нескольких факторов на гипертрофию мышц вследствие физических нагрузок: от гормонов до механического напряжения. Стоит сказать кое-что важное: несмотря на то, что на данный момент мы имеем огромное количество данных о механизмах гипертрофии, мы имеем и столько же пробелов в знаниях об этом процессе. Постоянно проводятся новые исследования, которые могут вносить новую информацию или даже опровергать старую. Поэтому, возможно, в тот момент, когда вы читаете эту статью, в ней актуально не все.
В нашей статье мы смогли увидеть, насколько гипертрофия мышц — сложный процесс не только с точки зрения самого труда, который человек вкладывает в создание желаемого тела, но и с точки зрения молекулярных процессов, которые протекают в нем. Это еще раз показывает, насколько мышечная ткань удивительна своей способностью к адаптации.
Каждому, кто прочитал до этого момента, желаю заниматься спортом и получать от него удовольствие :)
Литература
- Гайтон А., Холл Дж. Медицинская физиология. М.: «Логосфера», 2008. — 1344 с.;
- Nigel A.S. Taylor, John G. Wilkinson. (1986). Exercise-Induced Skeletal Muscle Growth. Sports Medicine. 3, 190-200;
- James McKendry, Tanner Stokes, Jonathan C. Mcleod, Stuart M. Phillips. (2021). Resistance Exercise, Aging, Disuse, and Muscle Protein Metabolism. Comprehensive Physiology. 2249-2278;
- Christine A. Henderson, Christopher G. Gomez, Stefanie M. Novak, Lei Mi‐Mi, Carol C. Gregorio. (2017). Overview of the Muscle Cytoskeleton. Comprehensive Physiology. 891-944;
- Paula Tapial Martínez, Pilar López Navajas, Daniel Lietha. (2020). FAK Structure and Regulation by Membrane Interactions and Force in Focal Adhesions. Biomolecules. 10, 179;
- Boyi Gan, Youngdong Yoo, Jun-Lin Guan. (2006). Association of Focal Adhesion Kinase with Tuberous Sclerosis Complex 2 in the Regulation of S6 Kinase Activation and Cell Growth. Journal of Biological Chemistry. 281, 37321-37329;
- Ming Zhao, Darren Finlay, Elizabeth Kwong, Robert Liddington, Benoit Viollet, et. al.. (2022). Cell adhesion suppresses autophagy via Src/FAK-mediated phosphorylation and inhibition of AMPK. Cellular Signalling. 89, 110170;
- David M. Thomson. (2018). The Role of AMPK in the Regulation of Skeletal Muscle Size, Hypertrophy, and Regeneration. IJMS. 19, 3125;
- Juha J. Hulmi, Bernardo M. Oliveira, Mika Silvennoinen, Willem M. H. Hoogaars, Hongqiang Ma, et. al.. (2013). Muscle protein synthesis, mTORC1/MAPK/Hippo signaling, and capillary density are altered by blocking of myostatin and activins. American Journal of Physiology-Endocrinology and Metabolism. 304, E41-E50;
- Per A. Tesch, Erland B. Colliander, Peter Kaiser. (1986). Muscle metabolism during intense, heavy-resistance exercise. Europ. J. Appl. Physiol.. 55, 362-366;
- Brooks G., Gladden B. The metabolic systems: Anaerobic metabolism (glycolytic and phosphagen). Exercise Physiology. — 360 p.;
- Brian S. Ferguson, Matthew J. Rogatzki, Matthew L. Goodwin, Daniel A. Kane, Zachary Rightmire, L. Bruce Gladden. (2018). Lactate metabolism: historical context, prior misinterpretations, and current understanding. Eur J Appl Physiol. 118, 691-728;
- Robert A. Robergs, Farzenah Ghiasvand, Daryl Parker. (2004). Biochemistry of exercise-induced metabolic acidosis. American Journal of Physiology-Regulatory, Integrative and Comparative Physiology. 287, R502-R516;
- H Westerblad, D G Allen. (1992). Changes of intracellular pH due to repetitive stimulation of single fibres from mouse skeletal muscle.. The Journal of Physiology. 449, 49-71;
- Lena Willkomm, Sarah Schubert, Raphael Jung, Manuela Elsen, Julika Borde, et. al.. (2014). Lactate regulates myogenesis in C2C12 myoblasts in vitro. Stem Cell Research. 12, 742-753;
- Tom Latham, Logan Mackay, Duncan Sproul, Muhammed Karim, Jayne Culley, et. al.. (2012). Lactate, a product of glycolytic metabolism, inhibits histone deacetylase activity and promotes changes in gene expression. Nucleic Acids Research. 40, 4794-4803;
- Hugo Cerda-Kohler, Carlos Henríquez-Olguín, Mariana Casas, Thomas E. Jensen, Paola Llanos, Enrique Jaimovich. (2018). Lactate administration activates the ERK1/2, mTORC1, and AMPK pathways differentially according to skeletal muscle type in mouse. Physiol Rep. 6, e13800;
- Christopher M. Brennan, Charles P. Emerson, Jane Owens, Nicolas Christoforou. (2021). p38 MAPKs — roles in skeletal muscle physiology, disease mechanisms, and as potential therapeutic targets. JCI Insight. 6;
- Tadashi Yoshida, Patrice Delafontaine. (2020). Mechanisms of IGF-1-Mediated Regulation of Skeletal Muscle Hypertrophy and Atrophy. Cells. 9, 1970;
- Christian Rommel, Sue C. Bodine, Brian A. Clarke, Roni Rossman, Lorna Nunez, et. al.. (2001). Mediation of IGF-1-induced skeletal myotube hypertrophy by PI(3)K/Akt/mTOR and PI(3)K/Akt/GSK3 pathways. Nat Cell Biol. 3, 1009-1013;
- Hoi-Shan Wong, Pratiksha A. Dighe, Vojtech Mezera, Pierre-Axel Monternier, Martin D. Brand. (2017). Production of superoxide and hydrogen peroxide from specific mitochondrial sites under different bioenergetic conditions. Journal of Biological Chemistry. 292, 16804-16809;
- Giorgos Konstantinos Sakellariou, Aphrodite Vasilaki, Jesus Palomero, Anna Kayani, Lea Zibrik, et. al.. (2013). Studies of Mitochondrial and Nonmitochondrial Sources Implicate Nicotinamide Adenine Dinucleotide Phosphate Oxidase(s) in the Increased Skeletal Muscle Superoxide Generation That Occurs During Contractile Activity. Antioxidants & Redox Signaling. 18, 603-621;
- D Iverson, L R DeChatelet, J K Spitznagel, P Wang. (1977). Comparison of NADH and NADPH oxidase activities in granules isolated from human polymorphonuclear leukocytes with a fluorometric assay.. J. Clin. Invest.. 59, 282-290;
- Jessica Bouviere, Rodrigo S. Fortunato, Corinne Dupuy, Joao Pedro Werneck-de-Castro, Denise P. Carvalho, Ruy A. Louzada. (2021). Exercise-Stimulated ROS Sensitive Signaling Pathways in Skeletal Muscle. Antioxidants. 10, 537;
- Hiroaki Murata, Yoshito Ihara, Hajime Nakamura, Junji Yodoi, Koji Sumikawa, Takahito Kondo. (2003). Glutaredoxin Exerts an Antiapoptotic Effect by Regulating the Redox State of Akt. Journal of Biological Chemistry. 278, 50226-50233;
- Hai-Xin Yuan, Kun-Liang Guan. (2016). Structural insights of mTOR complex 1. Cell Res. 26, 267-268;
- H. Yang, J. Wang, M. Liu, X. Chen, M. Huang, et. al. Cryo-EM structure of mTORC1 — Worldwide Protein Data Bank;
- Stefania Battaglioni, Don Benjamin, Matthias Wälchli, Timm Maier, Michael N. Hall. (2022). mTOR substrate phosphorylation in growth control. Cell. 185, 1814-1836;
- Don Benjamin, Michael N. Hall. (2026). mTOR Substrate Phosphorylation in Growth Control: An Update. Cancers. 18, 1944;
- Farnaz Bahrami-B, Parvin Ataie-Kachoie, Mohammad H Pourgholami, David L Morris. (2014). p70 Ribosomal protein S6 kinase ( Rps6kb1 ): an update. J Clin Pathol. 67, 1019-1025;
- Thomas Weichhart. (2018). mTOR as Regulator of Lifespan, Aging, and Cellular Senescence: A Mini-Review. Gerontology. 64, 127-134;
- C. D. Reimers, G. Knapp, A. K. Reimers. (2012). Does Physical Activity Increase Life Expectancy? A Review of the Literature. Journal of Aging Research. 2012, 1-9;
- Kirill Schaaf, Daniel Jacko, Sebastian Gehlert. (2026). The Repair Tax of Resistance Training: Microdamage Control as a Molecular Gatekeeper of Hypertrophy. Exerc Sci. 35, 18-32;
- Felipe Damas, Cleiton A. Libardi, Carlos Ugrinowitsch. (2018). The development of skeletal muscle hypertrophy through resistance training: the role of muscle damage and muscle protein synthesis. Eur J Appl Physiol. 118, 485-500;
- William J. Kraemer, Keijo Häkkinen, Robert U. Newton, Bradley C. Nindl, Jeff S. Volek, et. al.. (1999). Effects of heavy-resistance training on hormonal response patterns in younger vs. older men. Journal of Applied Physiology. 87, 982-992;
- J. L. Copeland, L. A. Consitt, M. S. Tremblay. (2002). Hormonal Responses to Endurance and Resistance Exercise in Females Aged 19-69 Years. The Journals of Gerontology Series A: Biological Sciences and Medical Sciences. 57, B158-B165;
- Derrick W. Van Every, Alysha C. D’Souza, Stuart M. Phillips. (2024). Hormones, Hypertrophy, and Hype: An Evidence-Guided Primer on Endogenous Endocrine Influences on Exercise-Induced Muscle Hypertrophy. Exercise and Sport Sciences Reviews. 52, 117-125;
- Cristina Benavente, Brad J. Schoenfeld, Paulino Padial, Belén Feriche. (2023). Efficacy of resistance training in hypoxia on muscle hypertrophy and strength development: a systematic review with meta-analysis. Sci Rep. 13;
- Domingo J. Ramos‐Campo, Brendan R. Scott, Pedro E. Alcaraz, Jacobo A. Rubio‐Arias. (2018). The efficacy of resistance training in hypoxia to enhance strength and muscle growth: A systematic review and meta‐analysis. European Journal of Sport Science. 18, 92-103.


Комментарии
0Чтобы оставить комментарий, необходимо
войти