

Candidatus Endonucleibacter. Бактерия, которая живет внутри ядра и подчиняет себе клетку
13 октября 2026
Candidatus Endonucleibacter. Бактерия, которая живет внутри ядра и подчиняет себе клетку

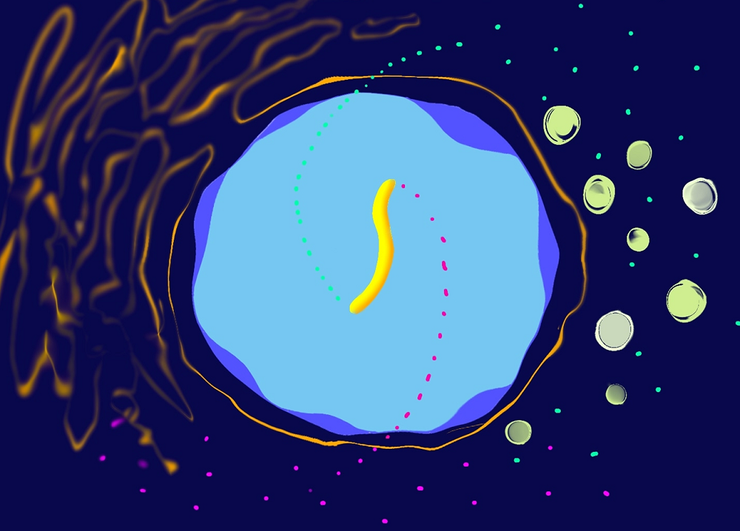
Candidatus Endonucleibacter обитает внутри клеточного ядра и выкачивает ресурсы из цитоплазмы.
Рисунок в полном размере.
рисунок автора статьи
-
Автор
-
Редакторы


Статья на конкурс «Био/Мол/Текст»: Многие бактерии паразитируют внутри клеток эукариот, но лишь некоторые из них приспособились жить в святая святых клетки — в ядре. Среди этих патогенов особенно выделяется бактерия Candidatus Endonucleibacter. Она поражает жабры глубоководных мидий из рода Bathymodiolus и размножается настолько эффективно, что заполненное бактериальными клетками ядро увеличивается в 50 раз. При этом она использует уникальные адаптации, позволяющие ей контролировать клетку и не давать ей уйти в апоптоз. В результате ядро, захваченное Candidatus Endonucleibacter, превращается в черную дыру, выкачивающую питательные вещества из цитоплазмы.
Конкурс «Био/Мол/Текст»-2026/2027
Эта работа опубликована в номинации «Свободная тема» конкурса «Био/Мол/Текст»-2026/2027.
Генеральный партнер конкурса — международная инновационная биотехнологическая компания BIOCAD.
«Книжный» спонсор конкурса — «Альпина нон-фикшн»
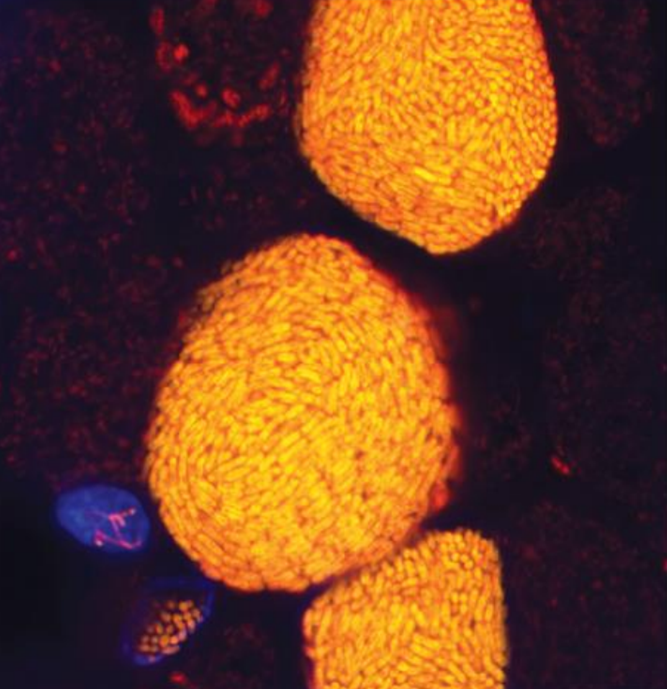
Рисунок 1. Candidatus Endonucleibacter в ядрах клеток жабер моллюсков Bathymodiolus. Желтый — бактерии (окрашены с помощью FISH на бактериальную 16S рРНК), синий — клеточная ДНК (окрашена с помощью красителя DAPI).
Существует довольно много бактерий, приспособившихся к внутриклеточному паразитизму, но лишь некоторые из них обитают в ядре. Большинство из них относятся к группе Rickettsiales и паразитируют на различных простейших. Внутриядерных паразитов многоклеточных животных известно гораздо меньше. Большинство из них живут, в основном, в цитоплазме и лишь изредка случайно проникают внутрь клеточных органелл. Известно лишь несколько облигатных внутриядерных паразитов. Это связано с тем, что клеточное ядро — весьма необычная экологическая ниша, и для того, чтобы успешно ее освоить, бактериям необходим ряд специфических адаптаций [1]. Никто не преуспел в этом так, как Candidatus Endonucleibacter. Из всех известных внутриядерных паразитов эта бактерия наиболее эффективно размножается и эксплуатирует клетку-хозяина. На поздних этапах инфекции объем ядра увеличивается в десятки раз, а численность бактериальных клеток в ядре достигает порядка 80 тысяч (рис. 1) [2], [3].
Для того, чтобы добиться такой эффективности размножения и предотвратить преждевременную гибель клетки, Candidatus Endonucleibacter использует множество ухищрений. Но прежде, чем о них говорить, стоит обсудить научные методы, с помощью которых ученым удалось их открыть. Candidatus Endonucleibacter обитает в очень необычных условиях, и культивировать эту бактерию в лаборатории невозможно. Поэтому для ее изучения используется микроскопия и омиксные технологии (подробнее об этих методах можно прочитать на «Биомолекуле»).
С помощью FISH-гибридизации можно проводить флуоресцентное окрашивание определенных участков генома бактерии, например, 16S рРНК. Это позволяет наблюдать за развитием бактерии и выделять клеточные ядра на разных этапах инфекции для того, чтобы затем провести анализ транскриптома и протеома паразитов. Кроме того, многие выводы были сделаны путем сравнения с другими внутриклеточными бактериями [4].
Наибольший вклад в изучение Candidatus Endonucleibacter внесли ученые из Института морской микробиологии Макса Планка [2–4].
Пир в сердце клетки
Candidatus Endonucleibacter заражает исключительно мидий из рода Bathymodiolus, причем только клетки жабр. Жизненный цикл бактерии выглядит следующим образом. Начинается все с единственной клетки палочковидной формы, которая проникает в ядро. Там она многократно удлиняется, а затем начинает делиться в продольном направлении. В итоге получается много нитевидных клеток. Они заполняют все ядро, и оно раздувается, достигнув размера в 50 раз больше обычного. Хроматин при этом вытесняется к периферии ядра. Исчерпав все ресурсы клетки, бактерии многократно делятся септами, и получается порядка 80 000 палочек. Они прорывают оболочку ядра, после чего клетка разрушается, и бактерии выходят наружу. Дальше они могут заражать новые клетки того же или другого моллюска [2]. Жизненный цикл показан на рисунке 2.
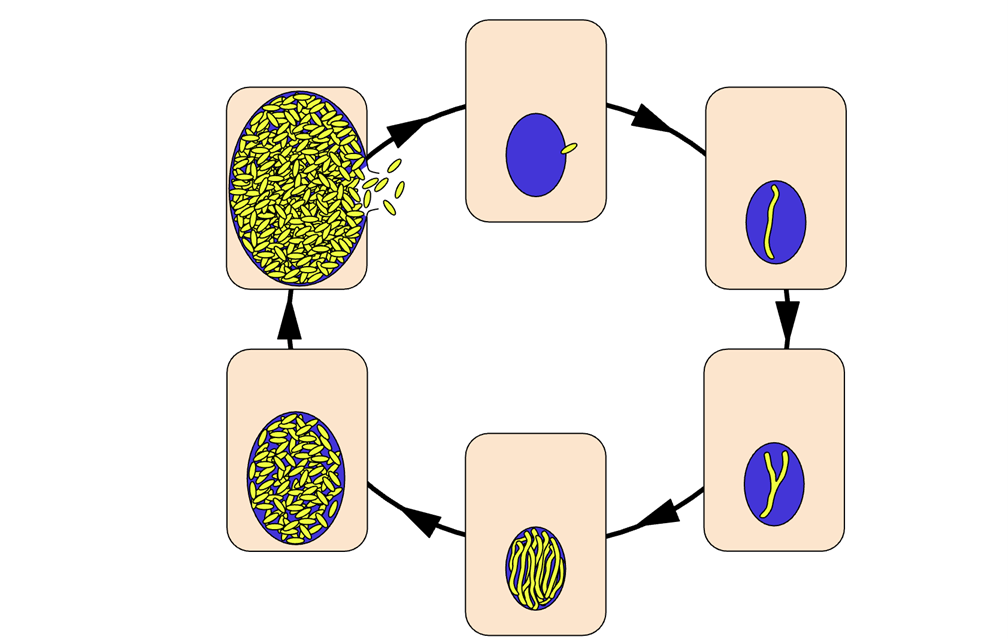
Рисунок 2. Жизненный цикл Candidatus Endonucleibacter.
рисунок автора
Путь к ядру
Как эндонуклеобактер проникает в клетку? Для этого используется специальный белковый комплекс — инъектосома T3SS. Она встраивается в клеточную мембрану и доставляет в цитоплазму факторы вирулентности, в том числе инозитолфосфатфосфатазу IpgD, которая гидролизует фосфатидилинозитол-4,5-бисфосфат (PIP2) до фосфатидилинозитол-5-фосфата (PI(5)P), который является важным регулятором цитоскелета. Повышение его уровня в клетке приводит к реорганизации актиновых филаментов и образованию мембранных выростов, которые окружают бактерию и смыкаются вокруг нее. В результате бактерия оказывается внутри вакуоли. То есть клетка против своей воли проглатывает паразита путем фагоцитоза [3]. Этот процесс схематично показано на рисунке 3.
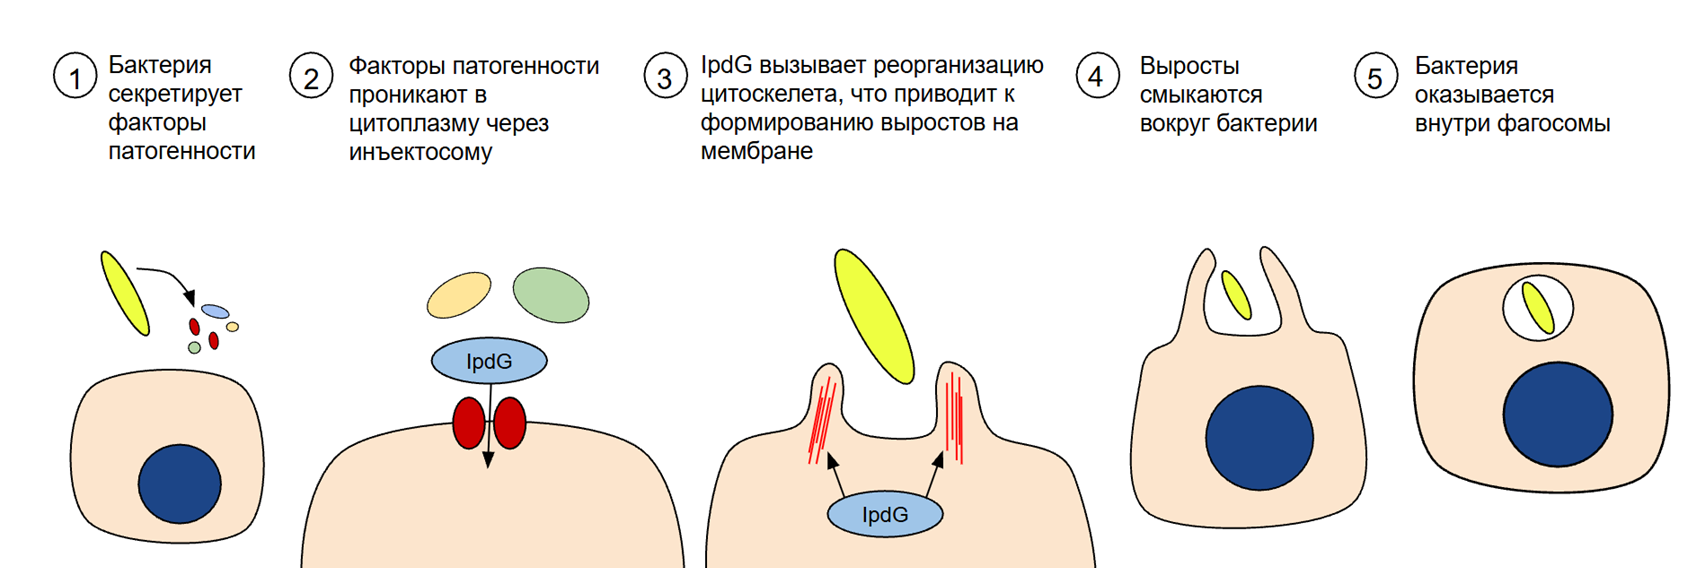
Рисунок 3. Механизм проникновения Candidatus Endonucleibacter в клетку.
рисунок автора
Фактор IpgD есть и у других внутриклеточных патогенов, например, у шигеллы. IpgD эндонуклеобактера гомологичен фосфатазе Shigella flexneri [5], поэтому, скорее всего, этот патоген проникает в клетку таким же способом. Для проникновения в ядро, скорее всего, тоже используется система IpgD-T3SS, хотя этот процесс до конца не изучен [3].
Черная дыра в цитоплазме
Чем питается Candidatus Endonucleibacter? Ученые, открывшие эту бактерию в 2009 году, предположили, что она потребляет хроматин [2]. Эта гипотеза кажется очень логичной. Казалось бы, зачем еще бактерии лезть в ядро, если не для того, чтобы полакомиться клеточной ДНК? К тому же на микрофотографиях было заметно уменьшение количества хроматина в зараженных ядрах. Однако при более тщательном изучении выяснилось, что на самом деле он не разрушается, а просто сплющивается, оттесняемый бактериями к периферии ядра. Поэтому он и кажется меньше, особенно на фоне многократно увеличившегося ядра [4].
Если бы Candidatus Endonucleibacter потреблял ДНК или мРНК, это привело бы к дисрегуляции генной экспрессии и очень быстро вызвало бы гибель клетки, так что бактерии не смогли бы достичь такой высокой численности. Исследования транскриптомов зараженных клеток подтвердили, что уровень экспрессии большинства генов во время инфекции не изменяется. Кроме того, у Candidatus Endonucleibacter отсутствуют гены секретируемых ДНКаз, РНКаз и импортеров нуклеотидов, наличие которых характерно для других внутриядерных бактерий, таких как риккетсии. Более того, хотя их геном редуцирован в связи с паразитическим образом жизни, у них сохранились все гены, необходимые для самостоятельного синтеза нуклеотидов [4].
Таким образом, Candidatus Endonucleibacter сдерживает себя и не покушается на содержимое ядра. Вместо этого она использует питательные вещества из цитоплазмы. Для того, чтобы обеспечить их постоянный приток в ядро, бактерия синтезирует большое количество транспортеров сахаров, липидов и аминокислот [4].
Одним из главных пищевых ресурсов для Candidatus Endonucleibacter являются липиды. Из-за того, что клетка находится в состоянии голода, в цитоплазме образуются липидные капли (это связано с тем, что состоящие из липидов внутриклеточные мембраны разрушаются в процессе аутофагии [6]). Кроме того, под действием IpdG увеличивается количество PI(5)P в цитоплазме [3]. PI(5)P оказывает значительное воздействие на цитоскелет. Он дополнительно стимулирует образование липидных капель и способствует тому, что они накапливаются вблизи ядра [7].
Судя по всему, Candidatus Endonucleibacter не ограничивается ресурсами цитоплазмы, потребляя также компоненты внеклеточного матрикса. При изучении транскриптома и протеома Candidatus Endonucleibacter выяснилось, что один из наиболее активно синтезируемых им белков — хитиназа ChiA, содержащая сигнал экспорта через систему T3SS. ChiA может расщеплять муцины — полисахариды, из которых состоит слизь, секретируемая клетками жабр. Продукты распада муцина — N-ацетилглюкозамин и его олигомеры — могут импортироваться в клетку, а затем в ядро. Как хитиназа попадает во внеклеточное пространство, до конца неизвестно, но, вероятно, экспортируясь из ядра, она оказывается в ЭПР, а затем секретируется с помощью экзоцитоза [3].
Размножаясь и заполняя ядро, бактерии выкачивают из цитоплазмы все больше ресурсов. Клетка чувствует нехватку питательных веществ и в ответ на это повышает активность импорта сахаров и окислительного метаболизма. Но ее старания оказываются тщетными: все идет на нужды паразита.
Мое ядро — моя крепость
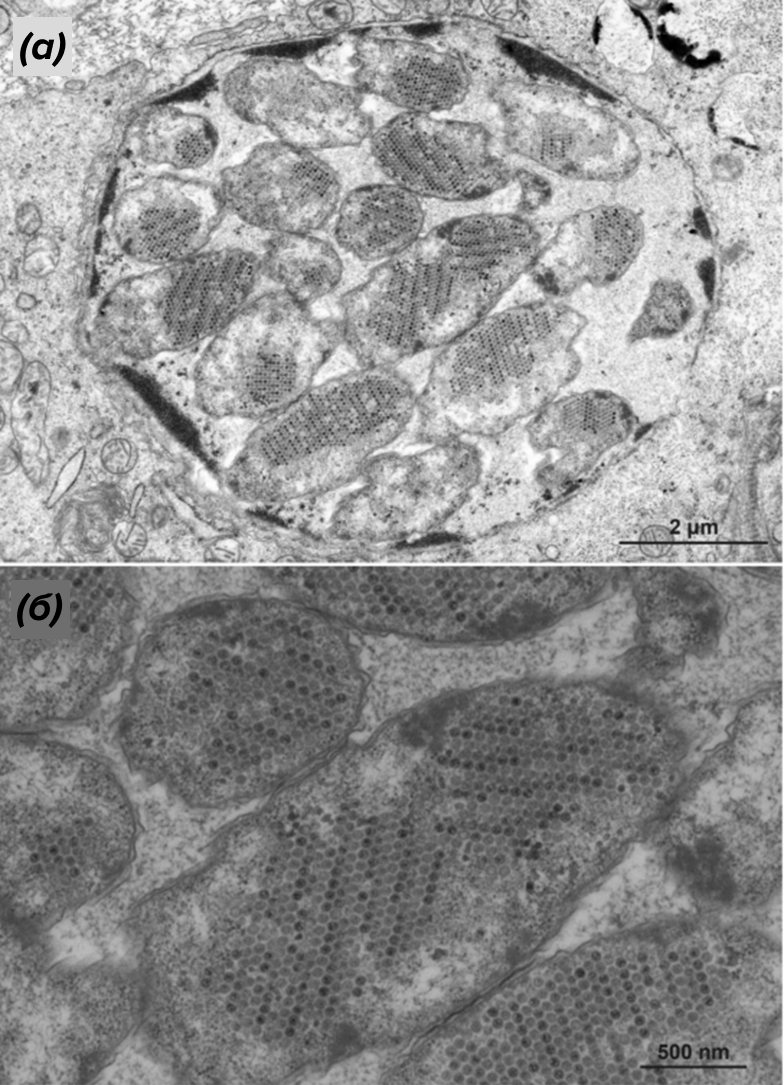
Рисунок 4. Электронная микрофотография ядра, содержащего клетки Candidatus Endonucleibacter, зараженные бактериофагами. (а) — ядро с бактериальными клетками; (б) — увеличенное изображение бактерий, зараженных бактериофагами.
Для борьбы с внутриклеточными паразитами существует специальный процесс, называемый ксенофагией. Сначала бактерию распознают и помечают белки-убиквитинлигазы. Это служит сигналом для фагофора — большой двухмембранной органеллы, которая окружает бактерию. С фагофором затем сливается лизосома, в которой содержатся ферменты, расщепляющие все его содержимое. По сути, клетка просто переваривает проникших в нее чужаков [8].
Бактерии, специализирующиеся на внутриклеточном паразитизме, используют всевозможные ухищрения, чтобы избежать ксенофагии, но Candidatus Endonucleibacter достаточно проникнуть в ядро, и он будет в безопасности. Ядро надежно отделено от остальной цитоплазмы двумя мембранами, и никаких фагофоров и лизосом в нем нет.
Единственное, что остается клетке для борьбы с паразитом — героически уйти в апоптоз. Разумеется, клетка не может не заметить, что ее ядро раздулось в 50 раз. Для того, чтобы детектировать изменение формы ядра, есть специальный рецептор Nesprin-1. Он закреплен на внешней ядерной мембране и обеспечивает связь между ядром и актиновым цитоскелетом. Деформация ядра приводит к растяжению актинового цитоскелета. В ответ на это Nesprin-1 активирует экспрессию каспазы-2. Эта каспаза локализована в яде, и прямо оттуда запускает апоптоз [9].
Паразиту крайне невыгодна преждевременная смерть хозяина. Поэтому у Candidatus Endonucleibacter выработался механизм, позволяющий ее предотвращать. Для этого он синтезирует ингибиторы апоптоза — IAP. Это белки, которые содержат домен BIR, связывающийся с каспазой и блокирующий ее активность. Некоторые из них также содержат домен RING, обладающий убиквитинлигазными свойствами. Такие белки не только блокируют каспазу, но и направляют ее на протеасомную деградацию [4].
Candidatus Endonucleibacter — первая бактерия, для которой показано наличие ингибиторов апоптоза. Ранее такой механизм был известен только у вирусов [4].
У Candidatus Endonucleibacter очень много ингибиторов апоптоза. В геноме одного из штаммов, Ca. E. puteoserpentis, их целых 13. Но откуда они там взялись? У бактерий отсутствуют и убиквитин-протеасомная система, и запускаемый каспазами апоптоз. Анализ последовательностей генов IAP показал, что они являются копиями генов хозяина и, скорее всего, были получены от него в ходе горизонтального переноса [3].
Горизонтальный перенос генов от эукариот к бактериям — достаточно редкое явление. Но в ядре, где обитает Candidatus Endonucleibacter, вероятность захвата клеточной ДНК значительно выше. Кроме того, в его геноме очень много мобильных генетических элементов, которые облегчают ее встраивание в геном. Возможно, в этом процессе также принимают участие вирусы. На микрофотографиях Candidatus Endonucleibacter часто видно большое количество бактериофагов внутри бактериальных клеток (рис. 4), но их роль в эволюции бактерии плохо изучена [3].
Темная сторона симбиоза
Как такая необычная бактерия могла возникнуть в ходе эволюции? Candidatus Endonucleibacter относится к семейству Endozoicomonadaceae. Ближайшими его родственниками являются бактерии Endozoicomonas — широко распространенные микроорганизмы, образующие симбиозы с морскими животными. Они встречаются у самых разных гидробионтов — от губок до рыб. Отношения с хозяевами разнятся от вида к виду, есть и мутуалистические бактерии, и комменсалы, и патогены [10]. Бактерии большинства видов живут вне клеток хозяев, но есть и внутриклеточные симбионты. Candidatus Endonucleibacter — единственная группа внутри семейства Endozoicomonadaceae, для которой характерен внутриядерный образ жизни [2].
Мутуалистические Endozoicomonas выполняют в организме хозяина широкий спектр функций. Они участвуют в циклах углерода, азота и серы, помогая животным получать из среды питательные вещества, а также обеспечивают их витаминами и аминокислотами, которые животные не могут синтезировать самостоятельно. Кроме того, они защищают хозяев от патогенных бактерий, занимая ниши, где они могли бы поселиться. Endozoicomonas входят в состав нормальной микрофлоры кораллов, а когда кораллы обесцвечиваются, эти бактерии их покидают [11].
У мидий Bathymodiolus также есть мутуалистические Endozoicomonas. Именно эти штаммы наиболее близки к Candidatus Endonucleibacter. В их геномах тоже гены IAP и большое количество транспозонов. По-видимому, общий предок этих Endozoicomonas и Candidatus Endonucleibacter был мутуалистической внутриклеточной бактерией. Он получил ген IAP в результате горизонтального переноса. Для той ветки его потомков, которая встала на путь паразитизма, это приобретение оказалось очень полезным. В ходе своей эволюции Candidatus Endonucleibacter приобрел дополнительные гены IAP и другие адаптации, позволившие ему стать идеальным внутриядерным паразитом [4].
Моллюски из другого мира
Стоит сказать пару слов о хозяине Candidatus Endonucleibacter. На дне океана обитает множество удивительных существ. Мидии Bathymodiolus — конечно, не самые яркие представители подводного мира. Внешне они не сильно отличаются от мидий из магазина. Но все же это весьма необычные животные. Они питаются не за счет фильтрации, как большинство других двустворчатых моллюсков, а потребляют сероводород или метан, поступающие из недр земли [12].
Bathymodiolus spp. обитают на больших глубинах возле гидротермальных источников и холодных (метановых) сипов — в местах, которые можно сравнить с оазисами в пустыне. Другие глубоководные зоны почти необитаемы, так как до них доходит очень мало питательных веществ с поверхности. Однако сообщества гидротермальных источников и сипов не зависят от фотосинтезирующих продуцентов. Их основу составляют хемоавтотрофные бактерии, которые вместо солнечной энергии используют топливо, поступающее из недр земли. Многие животные научились вступать с ними в симбиотические отношения. В том числе и мидиии Bathymodiolus spp., на которых в этих сообществах приходится значительная доля биомассы [13].
Органом, в которых у Bathymodiolus spp. живут симбионты, являются жабры. Они заметно увеличены по сравнению с жабрами их мелководных родственников-фильтраторов и состоят из тысяч нитей, образованных бактериоцитами — специализированными клетками, в которых живут симбионты. Разные виды Bathymodiolus отличаются друг от друга составом симбиотической микрофлоры. Это зависит от типов подземных источников, возле которых они обитают. У видов, населяющие места выхода сероводорода, в жабрах обитают сероокисляющие бактерии, способные фиксировать углекислый газ. Для обитателей холодных сипов характерны метанокисляющие бактерии, использующие метан как источник сразу и энергии, и углерода. Некоторые виды Bathymodiolus используют одновременно и тех, и других симбионтов [3]. В их жабрах могут образовываться сообщества из многих видов хемоавтотрофных микроорганизмов (рис. 5).
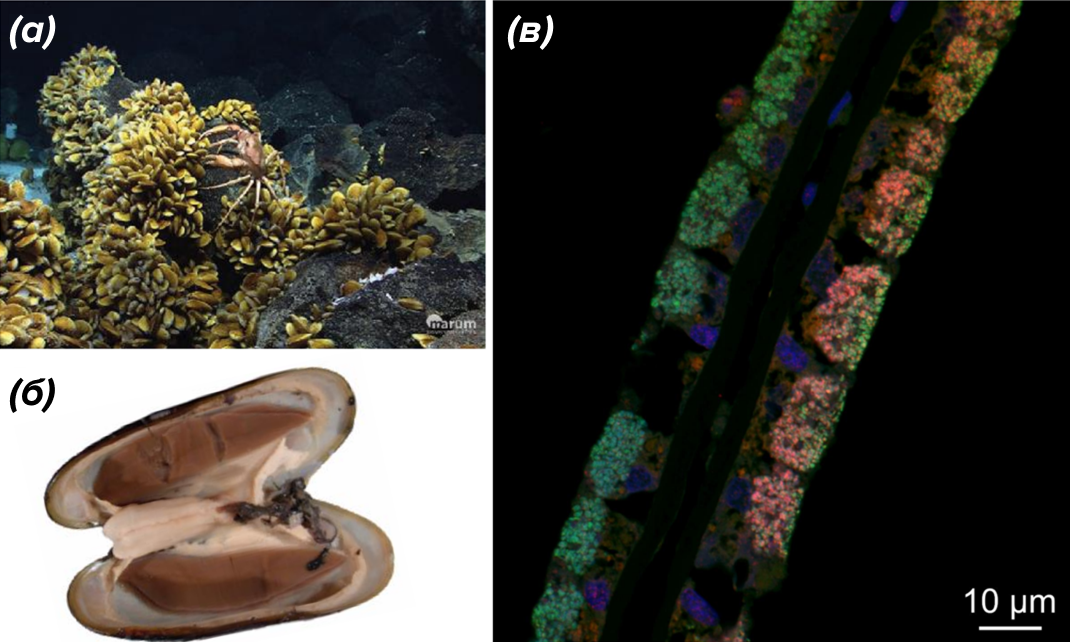
Рисунок 5. Мидии Bathymodiolus и их симбионты. (а) — колония мидий возле гидротермального источника. (б) — мидия с открытыми створками. (в) — изображение жаберной нити, полученное с помощью метода FISH-гибридизации. Зеленый — сероокисляющие бактерии, красный — метанокисляющие бактерии, синий — ядерная ДНК клеток мидии.
Помимо бактериоцитов, в жабрах мидий есть клетки, лишенные симбионтов. Примечательно, что эндонуклеобактер паразитирует именно в них, но никогда не проникает в бактериоциты. Это говорит о том, что симбионты каким-то образом препятствуют размножению патогена. Возможный механизм защиты заключается в изменении ультраструктуры поверхности клеток. Пустые клетки жабр имеют на своей поверхности микроворсинки. Как только в них проникают первые симбионты, микроворсинки исчезают, и мембрана становится гладкой. Вероятно, это препятствует распознаванию клетки бактериями [14].
Candidatus Endonucleibacter не сильно страдает от того, что не может инфицировать клетки, занятые симбионтами, так как в пустых клетках условия более подходящие. Симбионты, особенно метанокисляющие бактерии, очень активно потребляют кислород, так что паразиты страдали бы от его недостатка. Кроме того, клеткам, лишенным симбионтов, необходимо получать питательные вещества из внешней среды. Они экспрессируют много транспортеров моносахаридов, что для бактерий очень выгодно [3].
Candidatus Endonucleibacter встречается у разных видов Bathymodiolus по всему земному шару. К счастью для мидий, клетки без симбионтов в их жабрах составляют меньшинство. Их гибель в результате инфекции не причиняет моллюскам особого вреда [3]. Так что Candidatus Endonucleibacter на самом деле не такой уж и страшный патоген. Вызываемая им болезнь выглядит совершенно фантастически, но для моллюсков это, по-видимому, обычное дело, что-то вроде простуды.
Заключение
Дно океана — это отдельный мир, совсем не похожий на то, что окружает нас на поверхности. Его населяют удивительные создания, которые служат прототипами существ из фантастических фильмов и книг, а некоторые выглядят так, что вымышленные твари на их фоне кажутся чем-то заурядным. Бактерии, вызывающие болезни у таких животных, должны быть под стать своим хозяевам. Candidatus Endonucleibacter bathymodioli — уникальный патоген, в совершенстве овладевший искусством внутриядерного паразитизма.
Литература
- Frederik Schulz, Matthias Horn. (2015). Intranuclear bacteria: inside the cellular control center of eukaryotes. Trends in Cell Biology. 25, 339-346;
- Frank U. Zielinski, Annelie Pernthaler, Sébastien Duperron, Luciana Raggi, Olav Giere, et. al.. (2009). Widespread occurrence of an intranuclear bacterial parasite in vent and seep bathymodiolin mussels. Environmental Microbiology. 11, 1150-1167;
- Porras M. Á. G. Molecular biology and evolution of the bacterial intranuclear parasite Ca. Endonucleibacter: PhD Thesis. University of Bremen, 2020;
- Miguel Ángel González Porras, Adrien Assié, Målin Tietjen, Marlene Violette, Manuel Kleiner, et. al.. (2024). An intranuclear bacterial parasite of deep-sea mussels expresses apoptosis inhibitors acquired from its host. Nat Microbiol. 9, 2877-2891;
- Kirsten Niebuhr, Noureddine Jouihri, Abdelmounaaim Allaoui, Pierre Gounon, Philippe J. Sansonetti, Claude Parsot. (2000). IpgD, a protein secreted by the type III secretion machinery of Shigella flexneri , is chaperoned by IpgE and implicated in entry focus formation. Molecular Microbiology. 38, 8-19;
- Angelika S. Rambold, Sarah Cohen, Jennifer Lippincott-Schwartz. (2015). Fatty Acid Trafficking in Starved Cells: Regulation by Lipid Droplet Lipolysis, Autophagy, and Mitochondrial Fusion Dynamics. Developmental Cell. 32, 678-692;
- Abdellah Akil, Juan Peng, Mohyeddine Omrane, Claire Gondeau, Christophe Desterke, et. al.. (2016). Septin 9 induces lipid droplets growth by a phosphatidylinositol-5-phosphate and microtubule-dependent mechanism hijacked by HCV. Nat Commun. 7;
- Kyle A. Bauckman, Nana Owusu-Boaitey, Indira U. Mysorekar. (2015). Selective autophagy: Xenophagy. Methods. 75, 120-127;
- Gabriela Paroni, Clare Henderson, Claudio Schneider, Claudio Brancolini. (2002). Caspase-2 Can Trigger Cytochrome c Release and Apoptosis from the Nucleus. Journal of Biological Chemistry. 277, 15147-15161;
- Matthew J. Neave, Amy Apprill, Christine Ferrier-Pagès, Christian R. Voolstra. (2016). Diversity and function of prevalent symbiotic marine bacteria in the genus Endozoicomonas. Appl Microbiol Biotechnol. 100, 8315-8324;
- Po-Shun Chuang, Sheng-Ping Yu, Po-Yu Liu, Ming-Tsung Hsu, Yu-Jing Chiou, et. al.. (2024). A gauge of coral physiology: re-examining temporal changes in Endozoicomonas abundance correlated with natural coral bleaching. ISME Communications. 4;
- Sven R. Laming, Sylvie M. Gaudron, Sébastien Duperron. (2018). Lifecycle Ecology of Deep-Sea Chemosymbiotic Mussels: A Review. Front. Mar. Sci.. 5;
- Hao Wang, Kai He, Huan Zhang, Quanyong Zhang, Lei Cao, et. al.. (2024). Deciphering deep-sea chemosynthetic symbiosis by single-nucleus RNA-sequencing. eLife. 12;
- Benedikt Geier, Maximilian Franke, Bernhard Ruthensteiner, Miguel Ángel González Porras, Alexander Gruhl, et. al.. (2019). Correlative 3D anatomy and spatial chemistry in animal-microbe symbioses: developing sample preparation for phase-contrast synchrotron radiation based micro-computed tomography and mass spectrometry imaging. Developments in X-Ray Tomography XII. 5.


Комментарии
0Чтобы оставить комментарий, необходимо
войти