

Кольца смерти: как внехромосомная кольцевая ДНК помогает развитию онкологии
29 октября 2026
Кольца смерти: как внехромосомная кольцевая ДНК помогает развитию онкологии

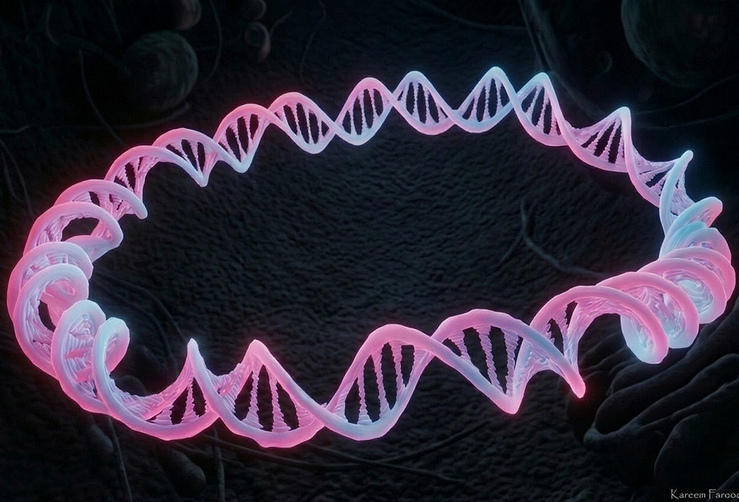
Модель кольцевой ДНК.
Рисунок в полном размере.
иллюстрация сгенерирована автором статьи при помощи нейросети AIgator
-
Автор
-
Редакторы


Статья на конкурс «Био/Мол/Текст»: Многие из нас знакомы с плазмидами бактерий. Это маленькие кольцевые фрагменты ДНК, которые свободно плавают в цитоплазме бактерий и несут часть их генетического материала. А если я скажу, что плазмиды есть и в геноме человека? Речь идет о внехромосомных кольцевых ДНК, которые образуются в наших клетках постоянно. Сегодня мы обсудим одну из самых распространенных разновидностей таких плазмид, а именно вкДНК раковых клеток. Я не просто так назвала эти элементы генома «Кольцами смерти». На самом деле, вкДНК уже несколько десятков лет вставляет палки в колеса онкологам, усложняя лечение и увеличивая злокачественность опухоли. В данной статье я расскажу все об этих Колечках смерти, в том числе и о том, как можно начать с ними бороться.
Конкурс «Био/Мол/Текст»-2026/2027
Эта работа опубликована в номинации «Школьная» конкурса «Био/Мол/Текст»-2026/2027.
Генеральный партнер конкурса — международная инновационная биотехнологическая компания BIOCAD.
Партнер номинации — Центральный университет —, инновационный российский вуз, внедряющий STEM-подход (Science, Technology, Engineering, and Mathematics) в высшее образование.
«Книжный» спонсор конкурса — «Альпина нон-фикшн»
Понеслась…
Несмотря на узкую направленность темы моей статьи, начать необходимо издалека, чтобы разобраться, что к чему.
Наиболее известный тип организации хроматина в клетках эукариот представляет собой линейные хромосомы. Однако в наше время также набирает популярность изучение разнообразных генетических элементов, находящихся за пределами хромосом. Ведь они могут оказывать ничуть не меньшее влияние на клетку, чем гены линейной последовательности. Одними из таких элементов являются внехромосомные кольцевые ДНК.
EccDNA (extrachromosomal circular DNA, внехромосомная кольцевая ДНК, вккДНК) представляет собой двухцепочечную кольцевую ДНК, находящуюся в ядре, но не входящую в состав ни одной из хромосом. Под такое достаточно расплывчатое определение подходит великое множество структур нашего генома, как временных, так и постоянных, например, малая полидисперсная кольцевая ДНК (SpcDNA), МикроДНК, теломерные круги и многое, многое другое... [1]. Однако в этой статье пойдет речь только об одном виде внехромосомной кольцевой ДНК — ecDNA (extrachromosomal DNA, вкДНК).
Признак, по которому вкДНК можно отделить от других разновидностей внехромосомных ДНК, — в первую очередь негативная роль этих элементов в развитии некоторых онкологических заболеваний [2]. Печально известен в данном контексте один из наиболее распространенных видов вкДНК — так называемые Двойные минуты (Double Minutes, DMs) [3], [4]. Немного кривой перевод термина означает, что такие кольцевые ДНК в клетках обычно обнаруживают парами. Другими характерными особенностями DMs являются отсутствие центромер и размер от 128 Кб до 5 Мб [3], [4] (1 килобаза = 1000 нуклеотидов, 1 мегабаза = 1 000 000 нуклеотидов). Именно эти Колечки смерти и являются главными героями (и злодеями) данной статьи [5].
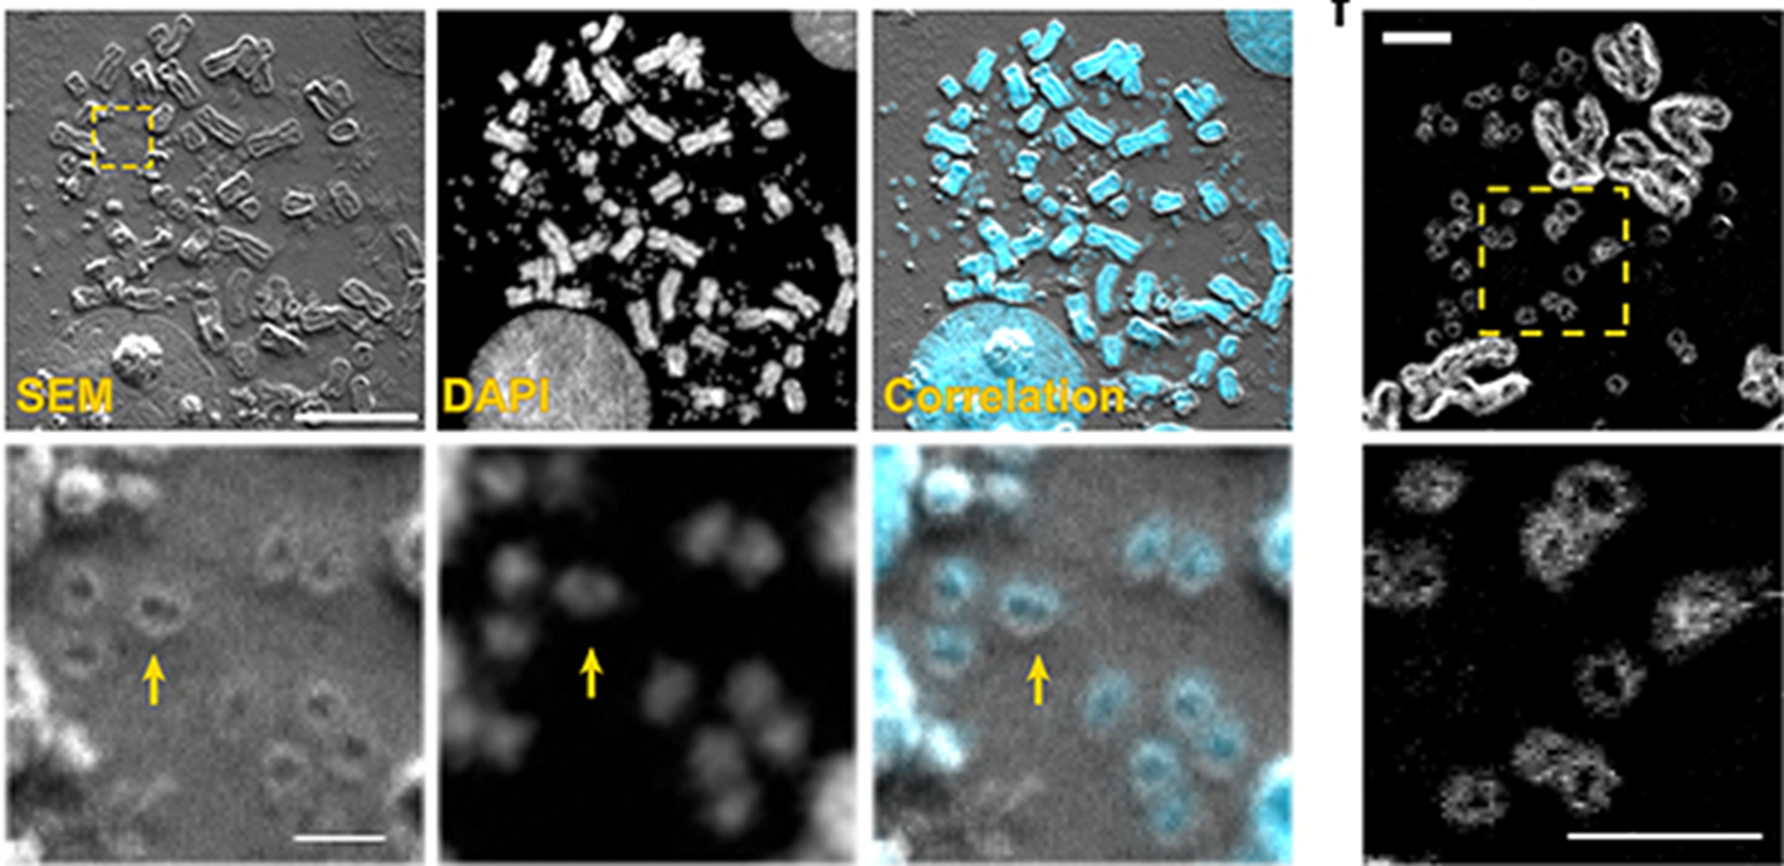
Рисунок 1. Получение изображения DMs с помощью методов SEM (сканирующая электронная микроскопия) и DAPI, а также их корреляция. Визуализация DMs с помощью метода SEM backscatter в клетках COLO320DM.
Генетическое землетрясение
Начать наше путешествие по вселенной вкДНК можно со способов образования этих структур.
На ранних этапах развития онкологического заболевания для многих раковых клеток характерно такое событие, как глобальная перестройка генома. Данный термин подразумевает масштабное изменение структуры хромосом и входящих в них генов, иными словами, большое количество мутаций разного вида за короткий промежуток времени [6]. Для такой перестройки подходящим смысловым синонимом может послужить словосочетание «геномная катастрофа». И правда, ситуацию, когда на наших глазах хромосомы, подобно зданиям при землетрясении, начинают распадаться на кусочки, по-другому не назовешь. И пока системы репарации ДНК тщетно пытаются хоть немного исправить положение, в клетке под шумок начинают накапливаться маленькие вкДНК.
Так как масштабы геномной катастрофы, как и любой другой, могут сильно различаться, для наглядности нам понадобится какая-то система оценки всего этого безобразия. Поэтому тщательный разбор механизма каждого генетического бедствия будет сопровождаться субъективной оценкой его разрушительности для клетки от 1 до 12 по шкале Рихтера, которую я любезно позаимствовала у геологов.
Однако перед этим стоит уделить внимание одному особенному механизму, который будет частенько встречаться нам далее. Хотя способы образования вкДНК различны, их всех объединяет участие в процессе одного из путей репарации двухцепочечных разрывов (DSB) — негомологичное соединение концов (NHEJ, non-homologous end joining). Он заключается в починке DSB путем прямого соединения двух цепей ДНК без проверки гомологии. Именно грубость и неразборчивость этого пути позволяют внехромосомным элементам незаметно ускользать из линейной последовательности, оставляя всех в дураках [6].
Эписомная модель
Начнем с малого. Эписомная модель подразумевает образование Колечек смерти при нарушении процесса транскрипции ДНК, а именно, при образовании R-петель . Системы репарации ДНК, прибывшие на место событий, решают проблему просто и быстро: с помощью эксцизии (вырезания) поврежденного гена. Вырасти до размеров DMs вырезанному фрагменту помогают множественные амплификации гена, а также интеграции некоторых мобильных элементов, например, транспозонов (TES) (рис. 2г). Данная модель была достаточно подробно исследована Storlazzi C. et al. на примере MYC-содержащей делеции при лейкемии [7]. Интересно отметить, что последствия образования вкДНК таким образом можно обнаружить не только благодаря увеличению количества DMs. На исходной хромосоме после делеции остаются так называемые «шрамы», которые достаточно хорошо заметны при более подробном изучении.
R-петли (r-loops) — структуры, которые образуются при транскрипции ДНК. Они состоят из матричной ДНК, а также комплементарно связанных РНК и смысловой ДНК. Таким образом, получается трехцепочечная структура.
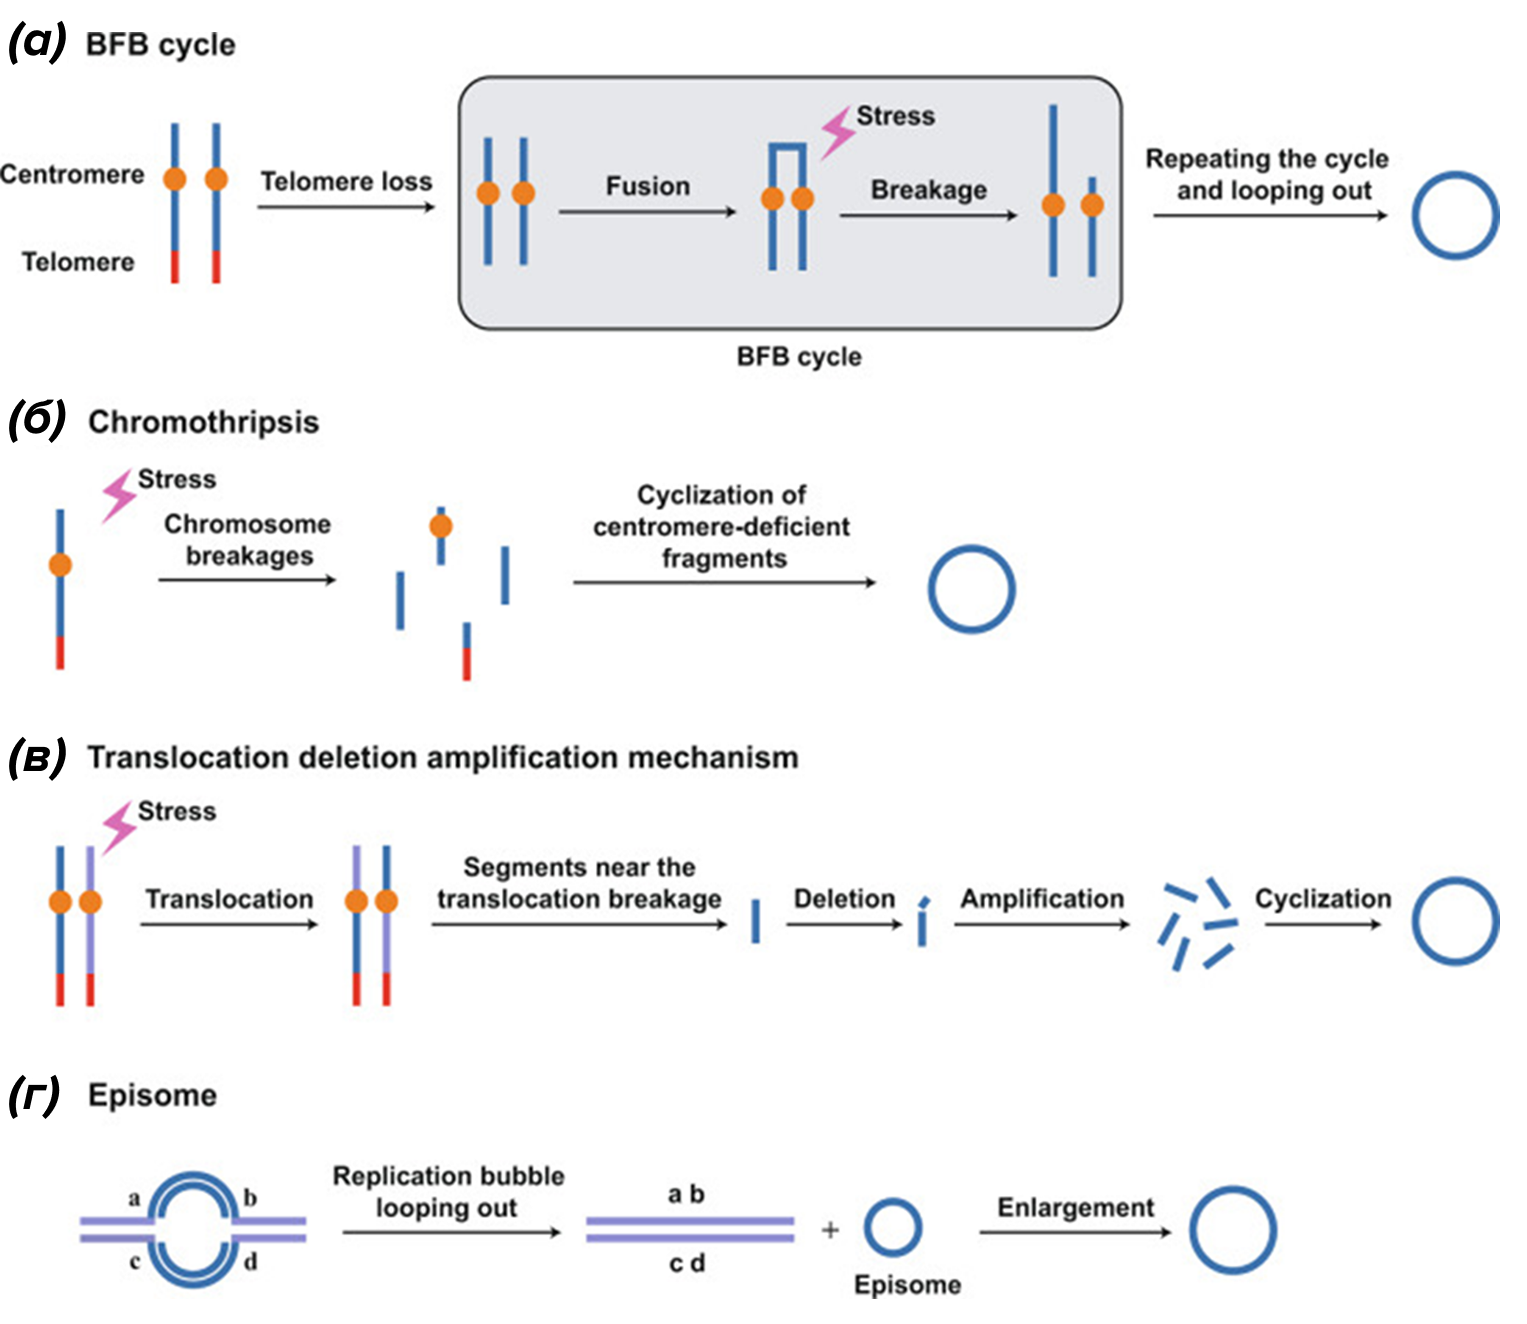
Рисунок 2. Способы образования вкДНК: (a) — с помощью циклов BFB; (б) — при протекании хромотрипсиса; (в) — механизм транслокации-делеции-амплификации (TDA); (г) — эписомная модель.
Последствия образования DMs путем эписомной модели включают только образование вкДНК и вероятное локальное повреждение хромосомы, так что ей можно дать максимум четверку (но все еще впереди!) [3], [6], [7].
Механизм транслокации-делеции-амплификации (TDA)
Следующая катастрофа была описана при изучении коамплификации MYC и ATBF1 в клетках SJNB-12, где происходила транслокация между 8-й и 16-й хромосомами [6] (рис. 2в). Такой процесс, как транслокация, обычно сопровождается многочисленными двухцепочечными разрывами. А где разрывы, там и NHEJ с вероятной утратой некоторых фрагментов. Нетрудно догадаться, что этими случайно утерянными фрагментами обычно являются гены, которые до этого подвергались транслокации. Если же NHEJ проходит без ошибок, у этих элементов есть и другая возможность вырваться на свободу. Она возникает, когда другие системы репарации ДНК пытаются немного «подчистить» после NHEJ, вырезая последовательности, которые не должны находится на данном локусе. В любом случае, вырезанные последовательности, как и в прошлый раз, амплифицируются, постепенно превращаясь в DMs [4], [6], [8].
Такому сложному событию, как TDA, можно дать смелую шестерку, так как мутации в данном случае накапливаются не только во внехромосомных элементах, но и в нескольких локусах на самих хромосомах.
Цикл разрыв–слияние–мост (BFB)
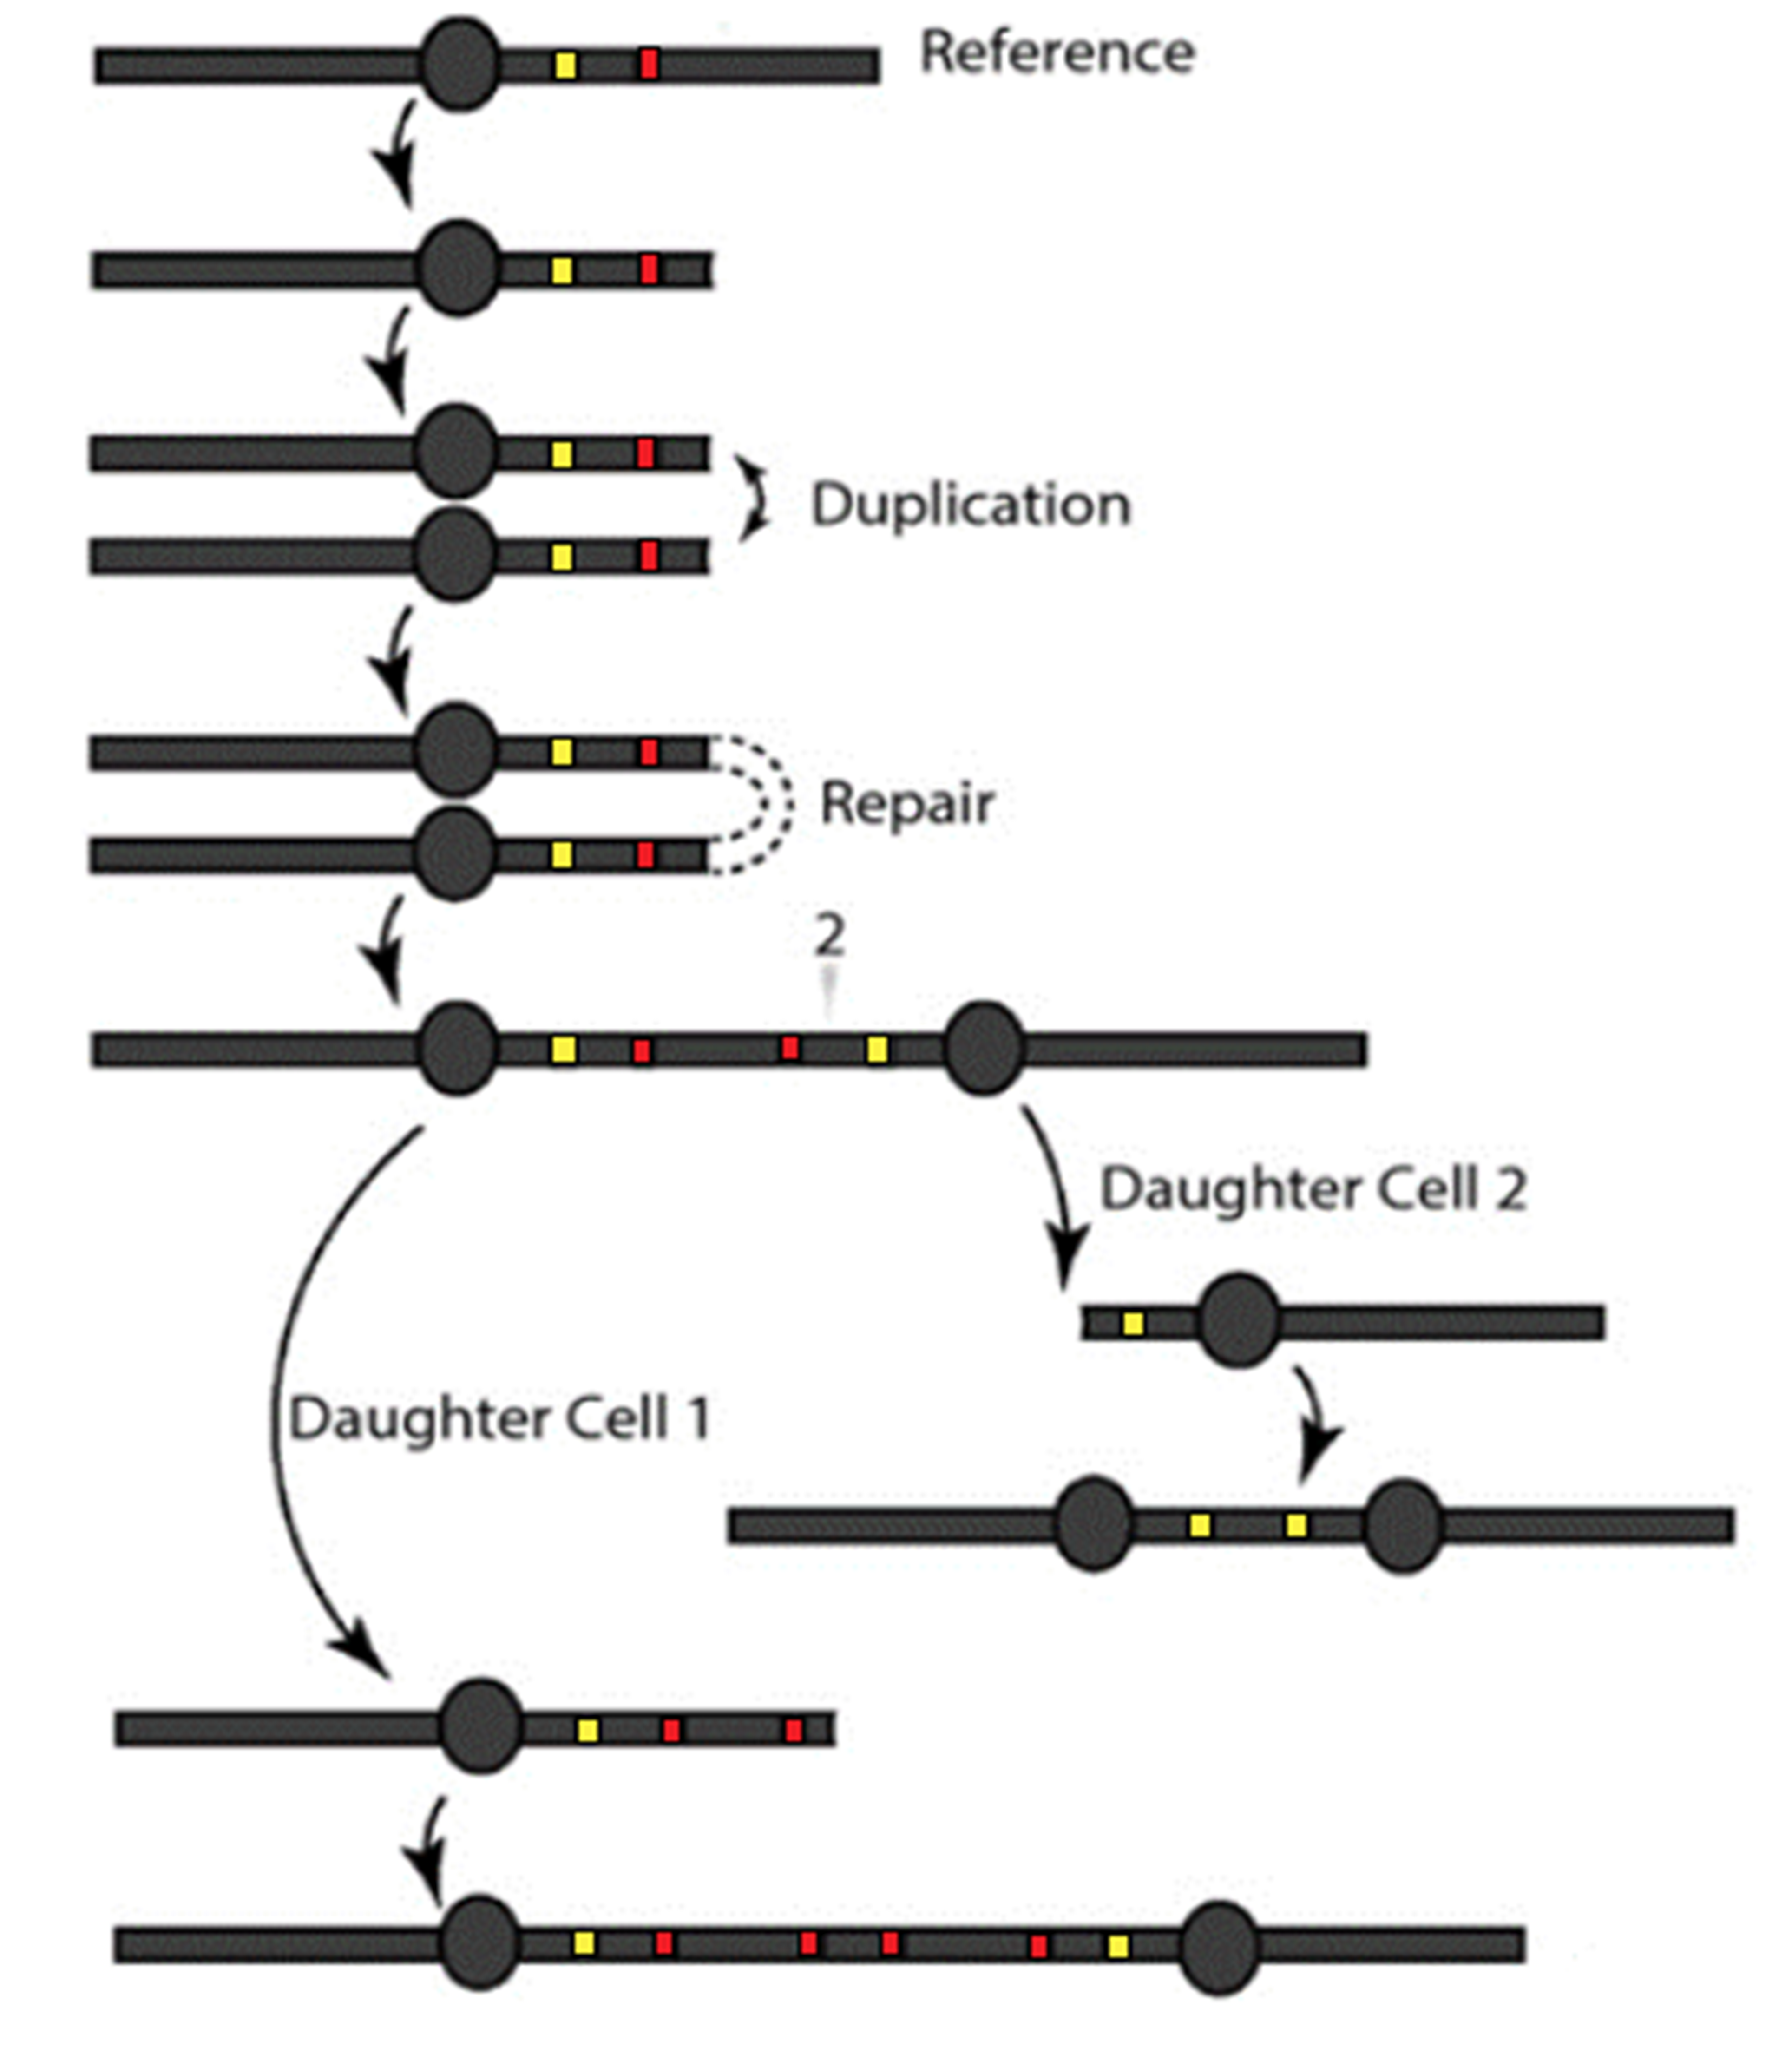
Рисунок 3. Модель цикла BFB. Кругами показаны центромеры. Желтые и красные полоски — гипотетические гены, на перемещении которых визуализируется неравномерное распределение генетического материала. Исходные хромосомы (Reference) претерпевают утрату теломер. После происходит сшивание хромосом в месте утраты (Repair) с образованием дицентрической хромосомы. Нити веретена деления неравномерно разрывают дицентрическую хромосому, при этом каждой клетке (Daughter cell 1, 2) достается одна из частей. После в каждой дочерней клетке цикл повторяется.
Как вы могли заметить, в данном заголовке слово «механизм» заменено на «цикл». Особенностью BFB является то, что единоразовая (и довольно нетипичная) мутация запускает целый каскад повторяющихся процессов, которые приводят к накоплению мутаций не в одной, а сразу в нескольких клетках (рис. 2а, рис. 3), поэтому BFB заслуживает не менее 9 баллов [9]. Однако обо всем по порядку.
Думаю, многим из моих читателей известен такой термин, как предел Хейфлика . В обычной клетке за остановку деления при достижении данного предела отвечают гены TP53 и RB, которые в раковой клетке нередко выключены [10]. В результате онкоклетки свободно пересекают все границы и пределы, а реплицированные во время синтетической фазы хромосомы остаются без теломер. Дополняют и без того неприглядную картину системы репарации ДНК, которые ошибочно принимают бестеломерные хромосомы за DSB и путем NHEJ сшивают их между собой [4], [10]. Продуктом всего этого беспредела является дицентрическая хромосома, содержащая две центромеры. Лучше всего дицентрическую хромосому можно разглядеть в анафазе (ее также называют анафазным мостиком, anaphase bridge), когда все остальные хроматиды уже разбежались к разным полюсам клетки. Однако митоз не может просто так прерваться, так что клетке в прямом смысле этого слова приходится «сжигать мосты»: цитоплазматическая 3’-экзонуклеаза TREX1 разрывает дицентрическую хромосому (иногда по несколько раз) ценой амплификаций, делеций и мутаций [10]. Таким образом, обе дочерние клетки получают по одной бестеломерной хромосоме (каждая из которых норовит начать цикл заново) и «бесхозные» фрагменты ДНК, которые после преобразуются в настоящие Кольца смерти [3], [4], [9], [10].
Предел Хейфлика — максимальное число делений, которое способны пройти нормальные соматические клетки [32]. Основная преграда для бесконечного митоза — длина теломер, которая сокращается с каждым разом. В раковых клетках, которые не знают меры, после достижения данного предела длина теломер на некоторых хромосомах может становится критической, а иногда и нулевой.
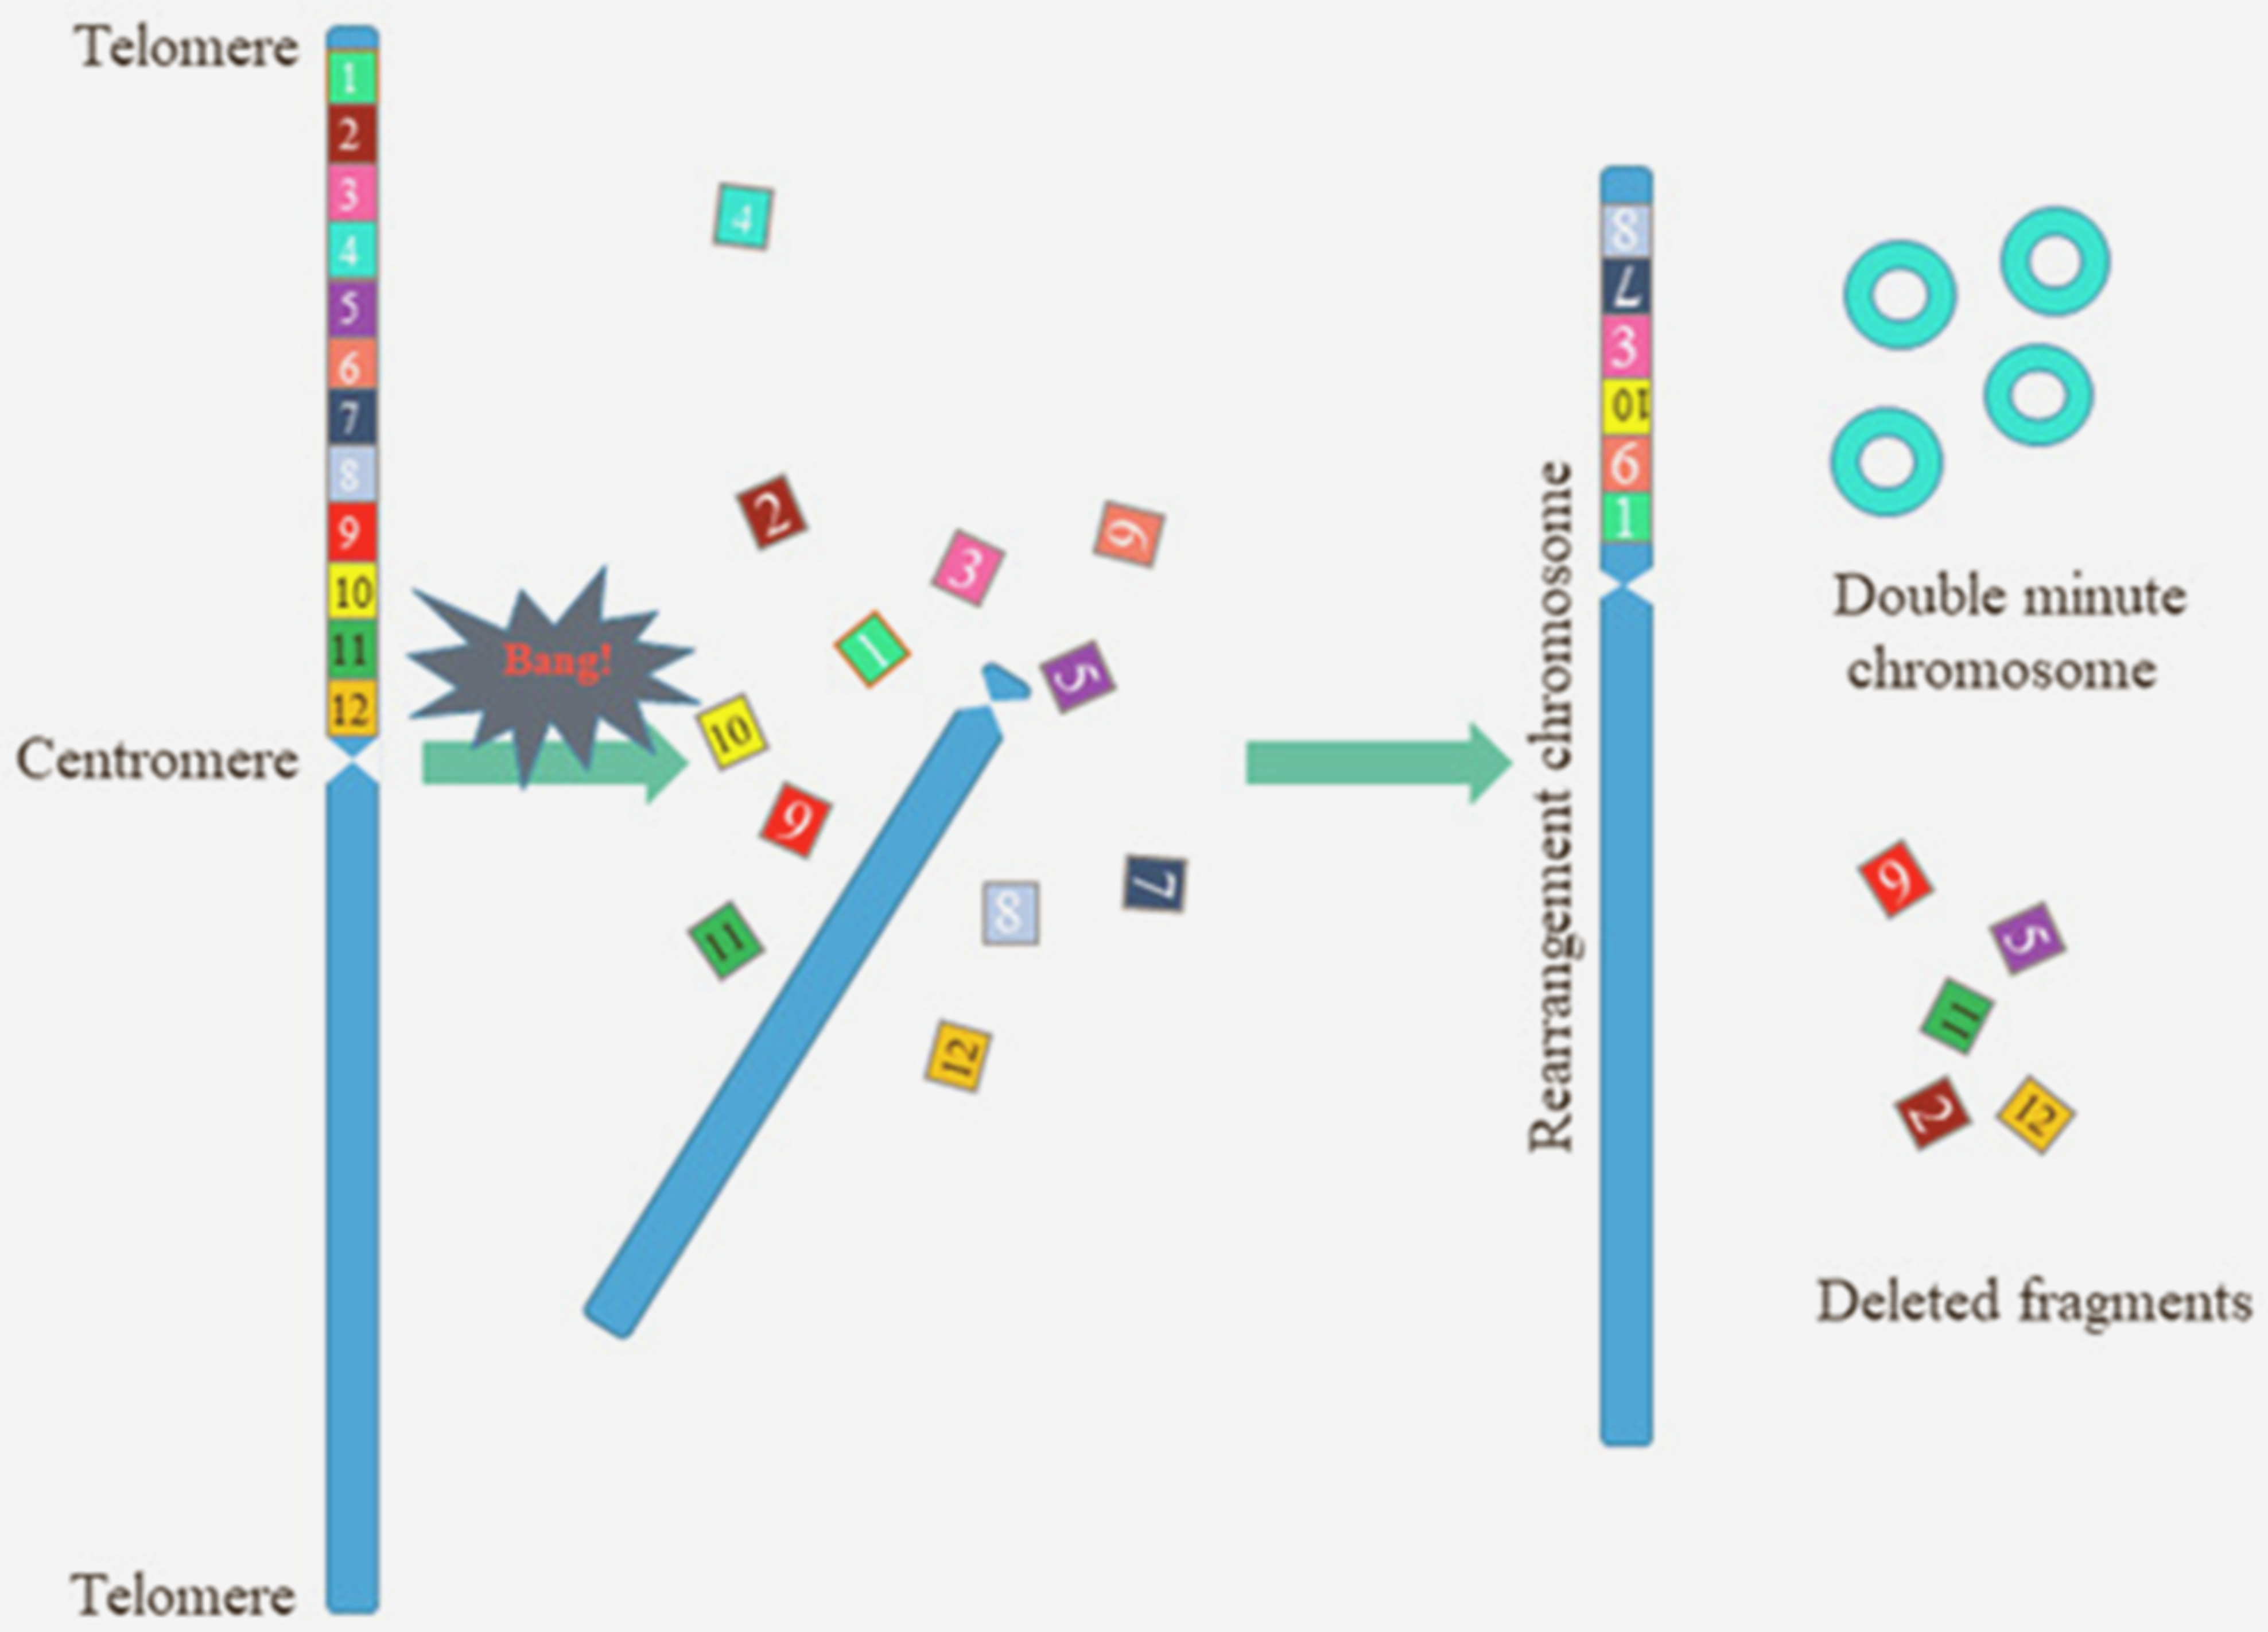
Рисунок 4. Визуализация механизма хромотрипсиса в общем виде. Для наглядности перемещения гены пронумерованы и окрашены в различные цвета. Как можно заметить, после «взрыва» в составе нового плеча хромосомы некоторые гены перевернуты, многие гены утрачены (например, 11, 2, 5), а другие преобразованы в DMs.
Хромотрипсис
Закончить эту главу нам предстоит настоящим генетическим катаклизмом, который тянет не менее чем на 11–12 баллов.
Хромотрипсис — достаточно интересное явление, которое можно описать как кратковременный клеточный кризис, ведущий к формированию множественных хромосомных перестроек (мутаций) (рис. 4). Впервые он был обнаружен в клетках лимфоцитарной анемии Стивенсом и коллегами в 2011 году. Каково же было удивление исследователей, когда они обнаружили целых 42 геномных перестройки только в длинном плече 4 хромосомы [11]! Со стороны это выглядело так, будто плечо хромосомы, словно конструктор Lego, разобрали на много маленьких кусочков, а после собрали эти кусочки обратно в произвольном порядке. При этом некоторые фрагменты вообще потерялись, а другие почему-то повторялись по нескольку раз.
Такое громкое открытие повлекло за собой череду исследований, результатом которых является множество предложенных механизмов хромотрипсиса. Конечно же, открывать дискуссию на эту тему здесь никто не собирается. Достаточно лишь обсудить, как хромотрипсис приводит к формированию вкДНК. Существует два потенциальных сценария (рис. 2, рис. 4):
- Первый — самый простой (рис.5 I). Помните потерянные кирпичики Lego? На самом деле, гены в их составе просто не выказывают желания принимать участие в великом объединении остальных фрагментов ДНК и начинают жить своей жизнью в виде амплифицированных Колец смерти. С учетом того, какой хаос происходит в это время в клетке, побег из линейной последовательности проходит достаточно легко.
Второй механизм — более сложный (рис.5 II). Он носит название «сейсмическая амплификация» и был предложен Ростворгом и соавторами в 2021 году [12].
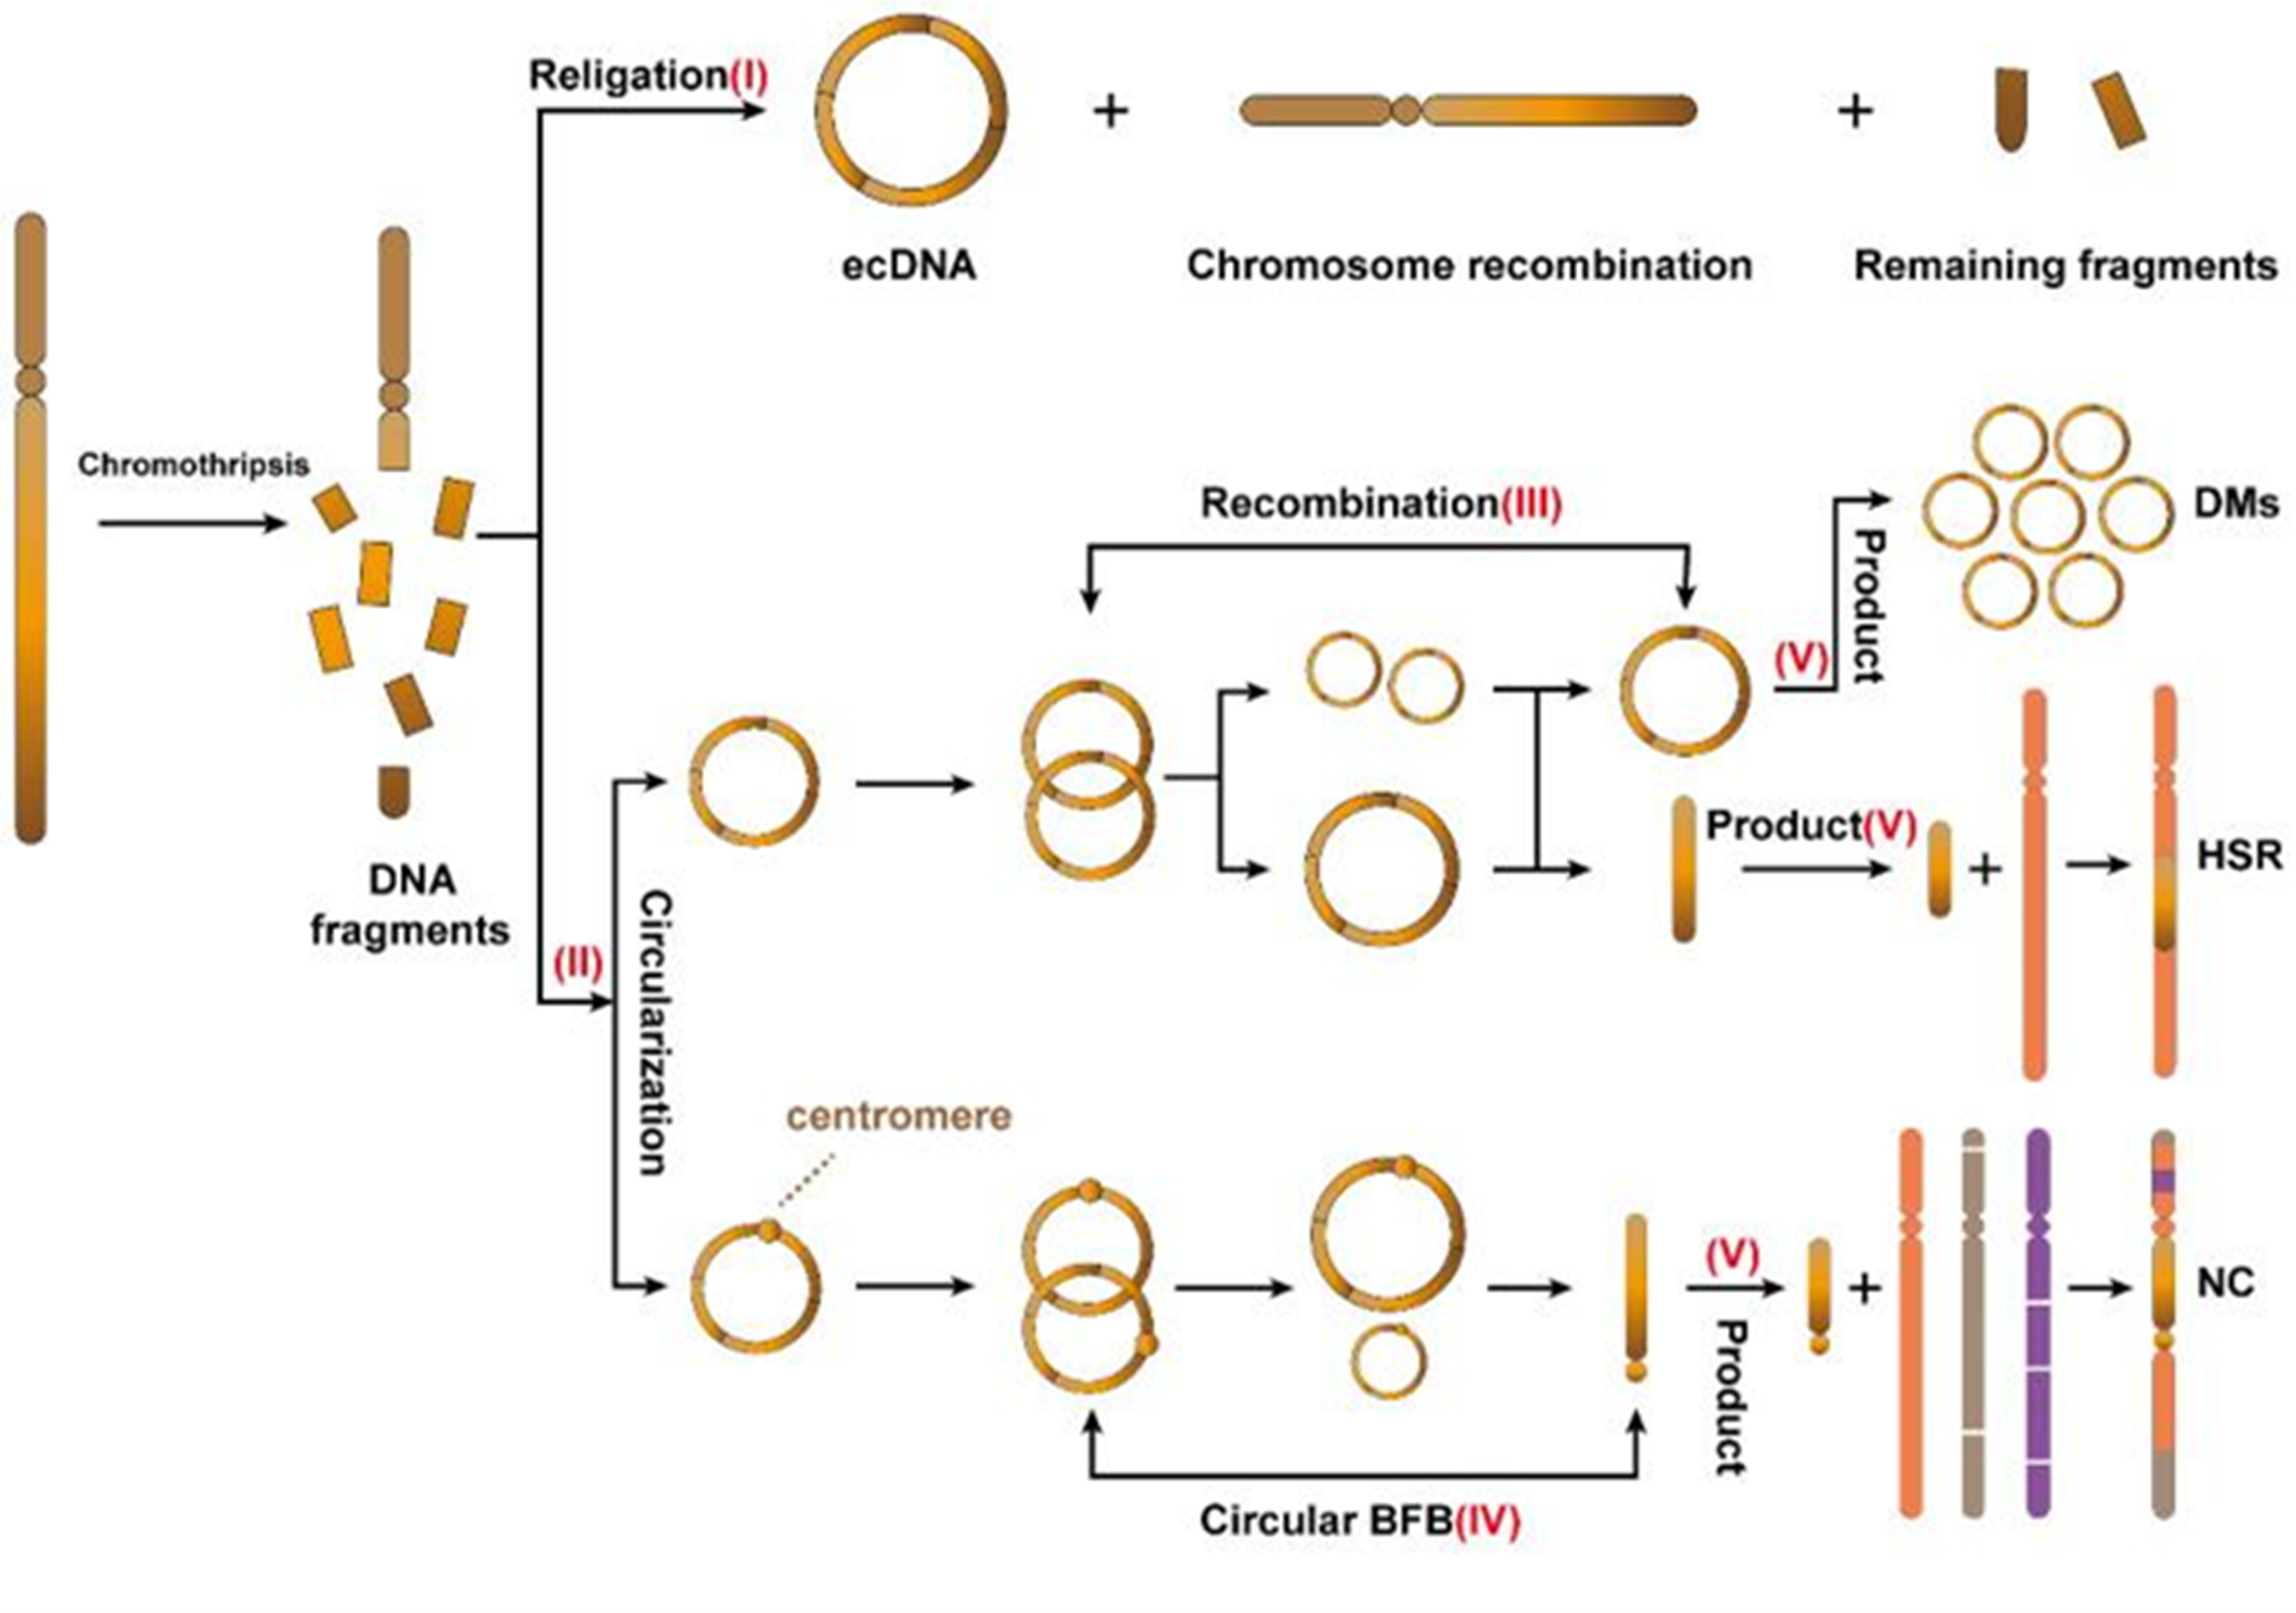
Рисунок 5. Возможные пути хромотрипсиса. I — фрагменты, образующиеся в результате хромотрипсиса, объединяются в вкДНК; II — фрагменты, которые образовались в результате хромотрипсиса, подвергаются сейсмической амплификации. После этого все фрагменты (как с центромерами, так и без них) циклизуются (Circulation, 2). Кольцевые ДНК без центромер подвергаются амплификации и циклической рекомбинации (Recombination, 3). Более крупные кольцевые фрагменты преобразуются в DMs, менее крупные линейные фрагменты встраиваются в хромосомы, образуя HSR (Product, 5). Кольцевые ДНК, содержащие центромеры, подвергаются циклам BFB и образуют линейные фрагменты с центромерами (Circular BFB, 4), которые объединяются в нехромосомы NH (Product, 5).
Процесс также начинается с образования коротких последовательностей путем хромотрипсиса. Большинство кусочков, не содержащих центромеры, так же, как и в прошлый раз, поспешно удаляются с места взрыва, начиная жить своей жизнью в виде DMs. Еще одна небольшая часть «наглых» фрагментов после амплификации может встраиваться в линейные хромосомы, образуя HSR (гомологично окрашенные участки). Однако также остаются особые кирпичики, содержащие центромеры, но не содержащие теломер. Где-то мы этих персонажей уже встречали...Помните? Конечно же, такие фрагменты являются отличными кандидатами на BFB. Единственное, на что стоит обратить внимание — название продукта BFB. Образовавшуюся в процессе цикла последовательность генов с центромерой хромосомой назвать нельзя, как минимум потому, что ее нет в нормальном кариотипе. Поэтому, согласно простой человеческой логике, ее назвали нехромосомой (NC) [3], [4], [10].
Злодеи и их злодеяния
Можно подумать, что я преувеличиваю, обвиняя мелкие кольцевые ДНК во всех бедах клетки. В конце концов, что нам может сделать жалкая плазмида? Однако эта глава, в которой мы разберем структуру и связанные с ней свойства внехромосомных злодеев от и до, покажет вам, что мои обвинения вовсе не беспочвенны. Итак, начнем...
... с размера (напомню, он составляет от 128 Кб до 5 Мб). Опытные биологи уже могли задаться вопросом, что же такого может кодировать вкДНК размером с бактериальный геном? Конечно, никаких абсолютно новых генов вкДНК не содержит. Все элементы в ее составе являются лишь множественными копиями «подлинного» гена, который имеет собственный адрес в одной из хромосом [5]. Стоит заметить, что жильцы по этому адресу не из приятных: исследованные DMs чаще всего содержат множественные копии онкогенов , например, EGFR, MYC, CDK4, MDM2 HER2, eIF5A2 [4], [5] Неконтролируемая транскрипция этих генов, в том числе и в составе вкДНК, способствует ускорению клеточного цикла и роста клеток, подавлению апоптоза и увеличению генетической нестабильности. Колечки смерти, содержащие такие онкогены, оказывают неоценимую услугу опухоли, ускоряя ее рост и развитие [3–5], [13]. Для нас это будет первой причиной относиться к вкДНК с опаской. Однако далеко не последней...
Онкогены — гены, продукт которых может стимулировать образование злокачественной опухоли.
Здесь необходимо отвлечься от состава DMs на другую очень важную особенность вкДНК — мобильность, или геномное ремоделирование. Эта особенность проявляется в постоянном перемещении и взаимодействии DMs с линейными хромосомами, при котором онкогены могут как встраиваться в линейные хромосомы, так и забирать у них приличные куски других генов или регуляторных элементов. Так, онкоген в составе Колечек смерти может бегать по всему геному, прячась от супрессоров и лечебной терапии. Но более интересно вот что: интеграция вкДНК намеренно может проходить в участках, содержащих гены-супрессоры опухолей (например, TP53). Такое наглое внедрение обычно происходит путем NHEJ, из-за чего нарушается экспрессия и функциональность супрессора. Ловко, не правда ли? [3], [14].
Таким же образом вкДНК, содержащая только амплифицированный онкоген, способна захватывать энхансеры (enhancer) — регуляторные элементы, которые, при наличии дополнительных белковых факторов, существенно повышают экспрессию генов. Действие этих элементов генома на целевые последовательности можно сравнить с действием катализатора транскрипции. Такой геномный катализатор имеет два «режима работы», которые называются цис-активность и транс-активность. Цис-активность подразумевает увеличение транскрипции рядом находящегося гена (в нашем случае, онкогена). Тут все понятно: эгоистичный онкоген берет к себе в команду полезного напарника, который обеспечивает первому безлимитную экспрессию. Но транс-активность, на мой взгляд, является настоящей генетической наглостью. Она проявляется при взаимодействии энхансера в составе DMs с линейной последовательностью или другими вкДНК, при этом происходит увеличение транскрипционной активности генов в составе этих структур. Именно поэтому Колечки смерти в клетках чаще всего обнаруживаются группами, или так называемыми «узлами»: в подобных структурах происходит не только обмен генами, но и непрерывное взаимное усиление экспрессии [3], [4].
Кстати, об экспрессии. Безусловно, на ее уровень влияет количество копий определенного гена, которых в данном случае хоть отбавляй, но не только. После оценки гистоновых меток, а также доступности хроматина с помощью методов ATAC-seq и MNase-seq было доказано, что нуклеосомная организация вкДНК намного менее плотная по сравнению с хромосомной. Простыми словами, вкДНК намного меньше «накручивает» себя на гистоны, чем хромосомная, что частично объясняет повышенный уровень экспрессии онкогенов в составе внехромосомных элементов (тревожным людям стоит задуматься) [3], [5], [15].
ATAC-seq, MNase-seq — методы секвенирования, которые используются для оценки структуры хроматина.
Помимо непостоянности состава входящих в вкДНК генов и регуляторных элементов, для Колечек смерти характерна сильная подверженность мутациям, причем не всегда типичным. Начнем с однонуклеотидных замен, которые подаются на завтрак, обед и ужин. Да и настоящий пир в виде катаэгиса происходит нередко. Катаэгис в Колечках смерти даже заслужил собственное название — киклоническая гипермутация. Причина для этого достаточно интересная: APOBEC3 — важнейший белок организма, который предотвращает размножение ретровирусов, специально подвергая мутациям их небольшие геномы. Этот самый APOBEC3 принимает DMs за настоящие ретровирусы и постепенно начинает вносить в них смуту в виде однонуклеотидных замен цитозина на урацил [3], [16].
Катаэгис — множественные мутации в одном из участков цепи.
Говоря о более крупных событиях, можно привести в пример делецию 16-экзона онкогена EGFR на вкДНК при глиобластосоме. Как отмечают исследователи, распространение DMs с таким генетическим составом могло привести к рецидиву заболевания после курса лечения. Больше всего удивляет, что новая разновидность гена EGFR, которая образовалась в результате данной мутации, до этого даже не существовала в базе данных EST (это означает, что такой последовательности никто раньше не встречал) [17].
Последнее, что стоит обсудить — репликация вкДНК. Несмотря на явное визуальное сходство, Кольца смерти по строению и свойствам достаточно далеки от бактериальных плазмид. Тем не менее, репликацию по типу катящегося кольца вкДНК переняли от них. Подробнее об этом механизме вы можете узнать в статье «Биомолекулы»: «Повтор, еще повтор!» [18]. Здесь стоит отметить лишь последствия работы данного механизма, такие как огромное количество копий вкДНК и ее неравномерное распределение между дочерними клетками [1], [20] (рис. 6).
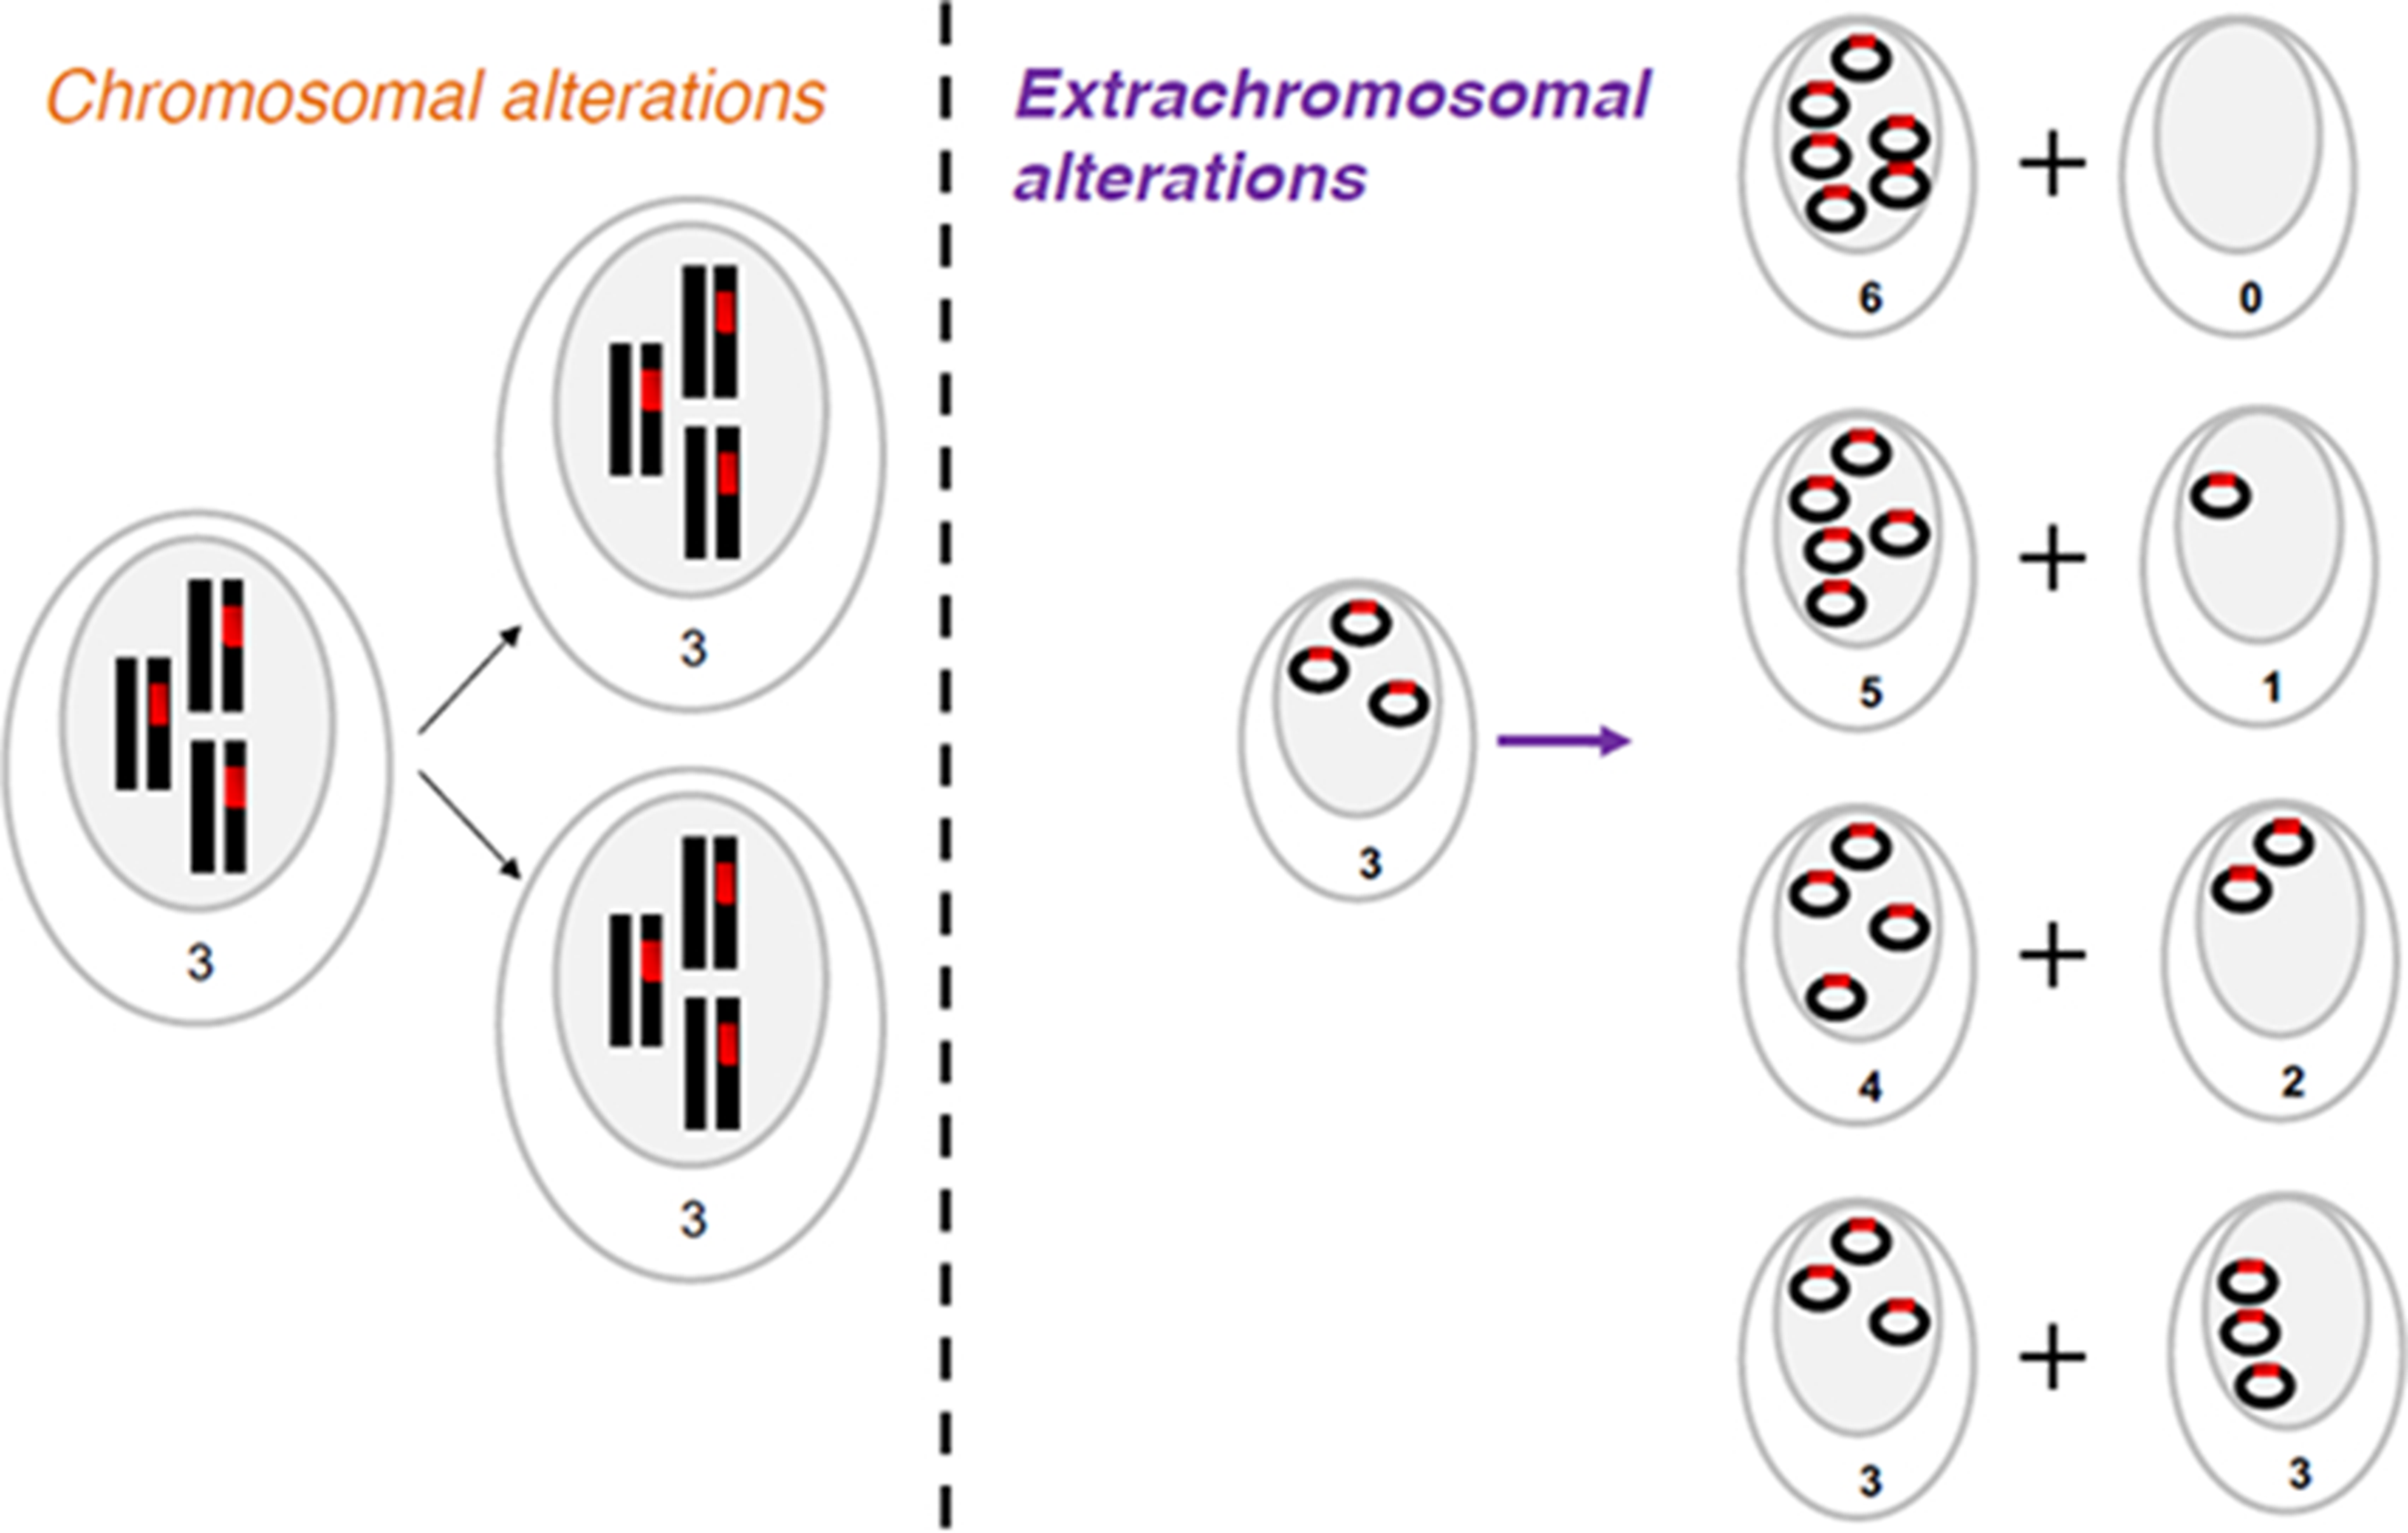
Рисунок 6. Распределение вкДНК между дочерними клетками, в отличие от линейных хромосом, происходит неравномерно.
Завершить этот ликбез можно показательной статистикой.
DMs, содержащие онкогены, обнаруживают примерно в 17–40% различных опухолей [19]. При этом у пациентов с онкологическими заболеваниями, у которых обнаруживают вкДНК, выживаемость значительно ниже, чем у пациентов без нее [2]. Например, исследования показали, что у больных медуллобластомой, в клетках которых обнаруживали вкДНК, вероятность смерти в течение 5 лет после постановки диагноза — в три раза выше [19]. При этом удаление DMs в некоторых случаях инициировало переход опухоли в доброкачественную [4].
Особенно важно уделить внимание исследованию вкДНК при таких заболеваниях, как глиобластома, нейробластома, аденокарцинома кардиального отдела желудка, рак толстой кишки и яичников [3].
«Кто виноват?» и «Что делать?»
На первый вопрос мы ответили достаточно развернуто. Но никакими описаниями, никакими изучениями нельзя помочь людям, страдающим от онкологии. Так что пора уже начать бороться с Колечками смерти и попытаться их уничтожить, или хотя бы обезвредить.
Самый логичный метод борьбы — предотвратить образование вкДНК (рис. 7в). Однако, как было отмечено выше, способов образования DMs слишком много, поэтому мы до сих пор не очень-то хорошо понимаем, где и когда именно они образуются. Единственный механизм, который можно встретить почти на каждом месте преступления — NHEJ. Для его ингибирования неплохо подойдет NU7026, который связывается с каталитической субъединицей протеинкиназы DNA-PKcS на этапе инициации NHEJ [6]. Все это, конечно, хорошо, но теория и практика — вещи разные, и клинические испытания никто не отменял. Ведь NHEJ, помимо всего прочего, имеет множество важных физиологических функций, которые нельзя просто игнорировать, например, репарация DSB в интерфазе митоза [3], [6], [21].
Второй по логичности метод — просто-напросто выкинуть вкДНК из клетки (рис 7а). Для этих целей как нельзя лучше подойдет препарат антиметаболит гидроксимочевина (antimetabolite hydroxyurea, HU). Действие HU основано на ингибировании рибонуклеотидредуктазы (фермент, ответственный за превращение рибонуклеотидов в дезоксирибонуклеотиды). Таким образом, препарат совершает диверсии в раковых клетках, забирая мономеры для репликации ДНК. Однако для нас важен и другой эффект HU — индуцирование образования микроядер. Микроядра могут образовываться, когда фрагменты ДНК без центромер во время митоза не могут разойтись ни к одному из полюсов в клетки, и в результате вообще остаются за бортом обоих ядер. Относительно доступная, постоянно реплицирующаяся вкДНК без центромер — идеальная мишень для такого препарата, что было продемонстрировано в исследовании Э. Раймона и коллег. Это исследование показало, что в некоторых случаях HU, назначаемая пациенткам с раком яичников, может уменьшить количество метафазных срезов, содержащих DMs. Несмотря на то, что HU уже широко используется в противоопухолевой терапии, специально для борьбы с вкДНК ее не применяют [3], [22], [23].
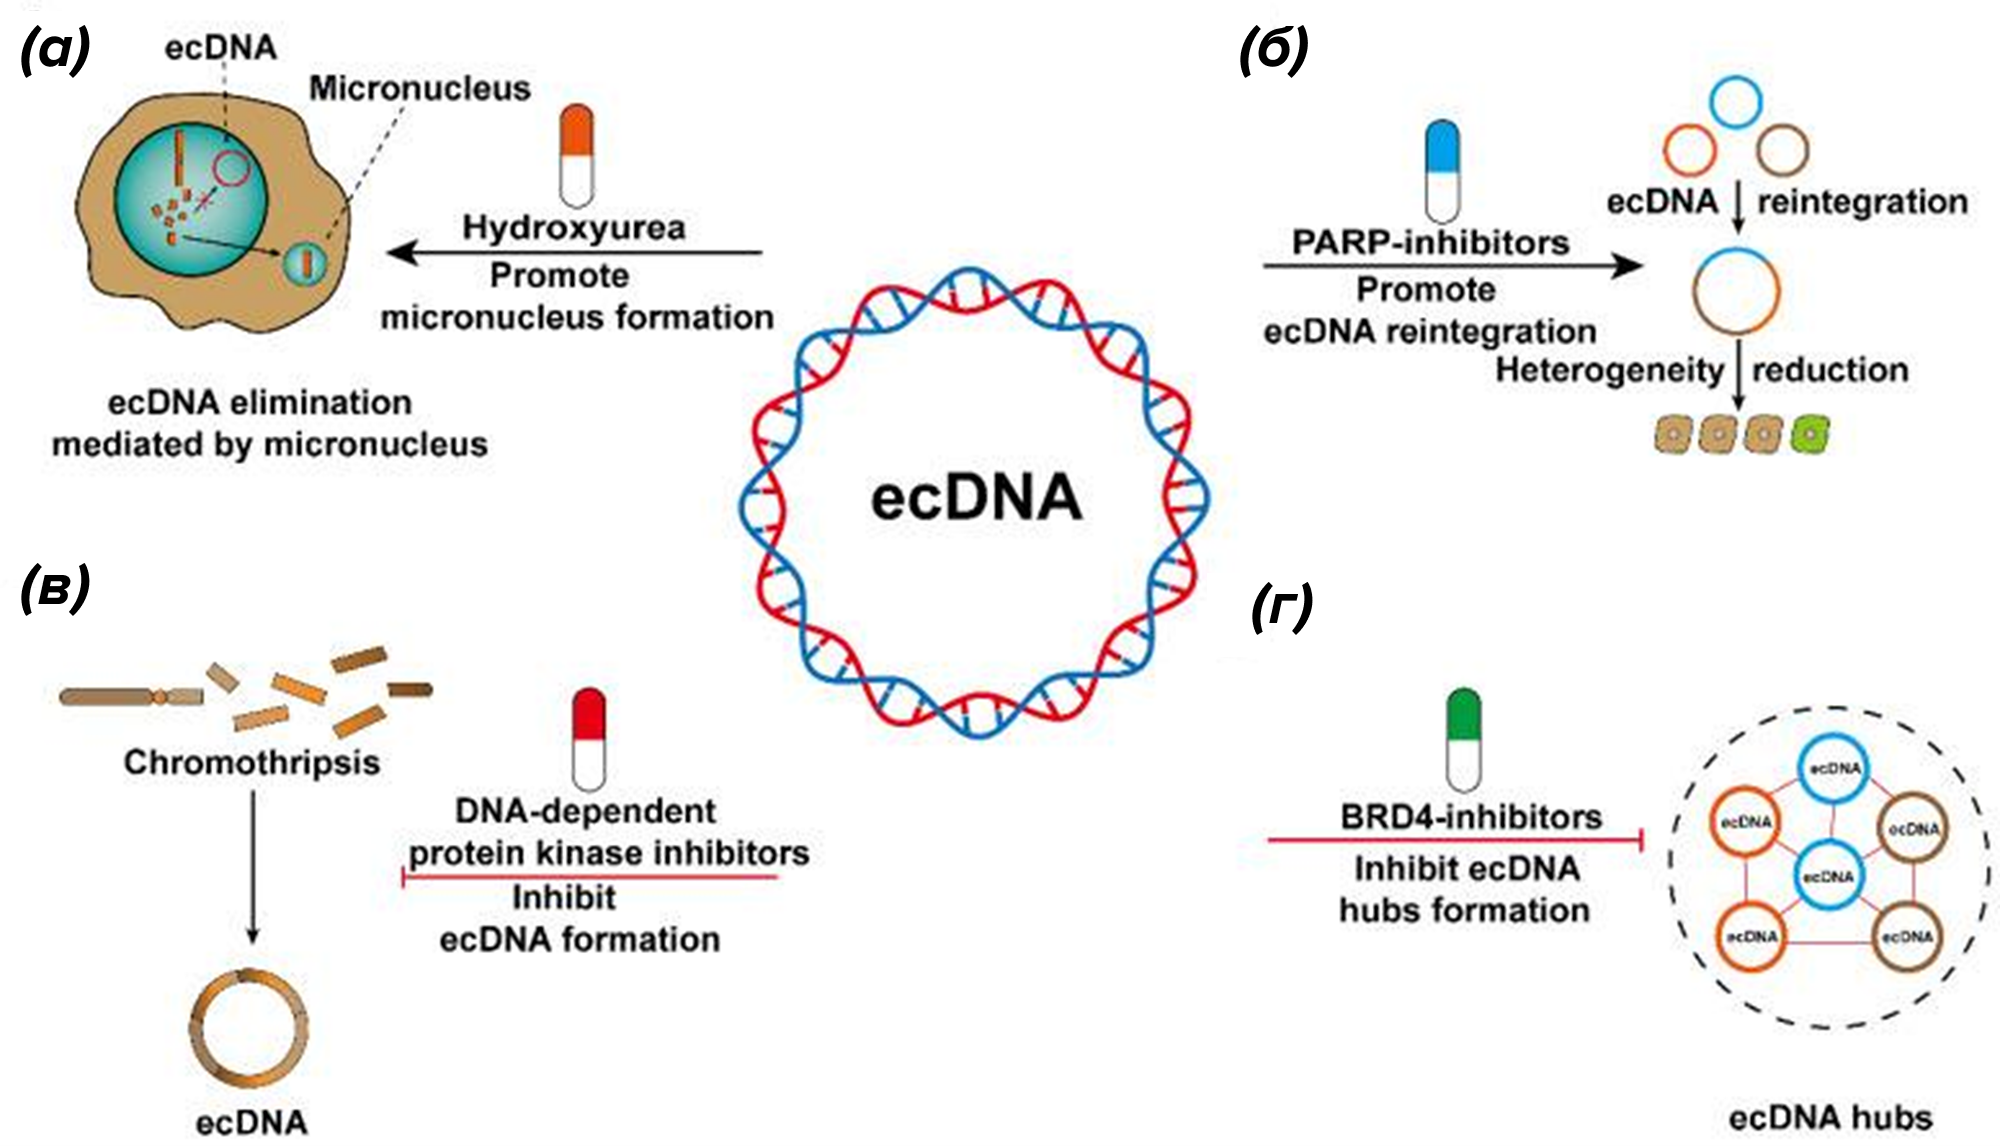
Рисунок 7. Методы борьбы с вкДНК при онкологии. (а) — удаление вкДНК при помощи гидроксимочевины. Инициирует образование микроядер и выведение вкДНК. (б) — ингибиторы PARP снижают гетерогенность опухоли путем ингибирования реинтеграции вкДНК. (в) — ингибирование ДНК-зависимых протеинкиназ предотвращает образование вкДНК. (г) — ингибиторы BRD4 предотвращают образование «узлов» вкДНК, где происходит обмен генами и проявляется транс-активность энхансеров.
Следующие в очереди — PARP ингибиторы, предотвращающие починку однонитевых разрывов с помощью ферментов семейств PARP (рис. 7в). Ингибиторы таким образом могут вставлять палки в колеса внехромосомным элементам, мешая им обмениваться генами с хромосомами и друг с другом. Однако с применением ингибитора PARP торопиться явно не стоит, ведь препарат негативно действует не только на Колечки смерти, но и на весь геном в целом, нарушая его системы репарации и функционирования [3], [21].
Также мы можем вовсе не уничтожать вкДНК, а просто снизить ее негативные эффекты. Помните разговор о генетической гетерогенности опухоли и мутациях? А белок APOBEC3? Конечно, его физиологическая функция тоже очень важна, однако, когда в организме появляется злокачественная опухоль, ретровирусы уходят на второй план. Тем не менее, и с этим методом нужно быть предельно осторожными [3]. Последний на сегодня способ — попытки разогнать кучки вкДНК, которые мы также обсуждали ранее (рис. 7г). Не бог весть что, но для внехромосомных элементов приятного мало: в таких узлах часто происходит обмен генами между Колечками смерти, а также проявляется трансактивирующая активность энхансеров (см. выше). Более поздние исследования показали, что такие группы вкДНК образуются из-за того, что DMs как пчелы на мед слетаются на белок BRD4. Он выполняет множество функций: от регуляции транскрипции до альтернативного сплайсинга. Однако ингибиторы данного белка, такие как JQ1 и OTX015, клинические испытания пока не проходили [3], [24].
Заключение
Вот и закончилось наше путешествие по небольшой, но очень интересной вселенной вкДНК. Возможно, для кого-то эта вселенная схлопывается до масштабов «генетической мелочи», которой явно не стоит уделять столько внимания. Однако каждая такая мелочь позволяет нам хоть немного приоткрыть завесу тайны развития раковых заболеваний. Главное в таких вещах — помнить, что любой, даже самый маленький шаг вперед, может спасти жизни людей.
Литература
- Знакомые незнакомцы: внехромосомные кольцевые ДНК;
- Hoon Kim, Nam-Phuong Nguyen, Kristen Turner, Sihan Wu, Amit D. Gujar, et. al.. (2020). Extrachromosomal DNA is associated with oncogene amplification and poor outcome across multiple cancers. Nat Genet. 52, 891-897;
- Zesheng Li, Bo Wang, Hao Liang, Lei Han. (2022). Pioneering insights of extrachromosomal DNA (ecDNA) generation, action and its implications for cancer therapy. Int. J. Biol. Sci.. 18, 4006-4025;
- Ludi Yang, Ruobing Jia, Tongxin Ge, Shengfang Ge, Ai Zhuang, et. al.. (2022). Extrachromosomal circular DNA: biogenesis, structure, functions and diseases. Sig Transduct Target Ther. 7;
- Sihan Wu, Kristen M. Turner, Nam Nguyen, Ramya Raviram, Marcella Erb, et. al.. (2019). Circular ecDNA promotes accessible chromatin and high oncogene expression. Nature. 575, 699-703;
- Rasmus A B Eugen-Olsen, Judith M Hariprakash, Vibe H Oestergaard, Birgitte Regenberg. (2025). Molecular mechanisms of extrachromosomal circular DNA formation. Nucleic Acids Research. 53;
- Clelia Tiziana Storlazzi, Angelo Lonoce, Maria C. Guastadisegni, Domenico Trombetta, Pietro D'Addabbo, et. al.. (2010). Gene amplification as double minutes or homogeneously staining regions in solid tumors: Origin and structure. Genome Res.. 20, 1198-1206;
- Nicolas Vogt, Anne Gibaud, Frédéric Lemoine, Pierre de la Grange, Michelle Debatisse, Bernard Malfoy. (2014). Amplicon rearrangements during the extrachromosomal and intrachromosomal amplification process in a glioma. Nucleic Acids Research. 42, 13194-13205;
- C. D. Greenman, S. L. Cooke, J. Marshall, M. R. Stratton, P. J. Campbell. (2016). Modeling the evolution space of breakage fusion bridge cycles with a stochastic folding process. J. Math. Biol.. 72, 47-86;
- Mariia Shorokhova, Nikolay Nikolsky, Tatiana Grinchuk. (2021). Chromothripsis—Explosion in Genetic Science. Cells. 10, 1102;
- Philip J. Stephens, Chris D. Greenman, Beiyuan Fu, Fengtang Yang, Graham R. Bignell, et. al.. (2011). Massive Genomic Rearrangement Acquired in a Single Catastrophic Event during Cancer Development. Cell. 144, 27-40;
- Carolina Rosswog, Christoph Bartenhagen, Anne Welte, Yvonne Kahlert, Nadine Hemstedt, et. al.. (2021). Chromothripsis followed by circular recombination drives oncogene amplification in human cancer. Nat Genet. 53, 1673-1685;
- Nicolas Vogt, Sandrine-Hélène Lefèvre, Françoise Apiou, Anne-Marie Dutrillaux, Andrej Cör, et. al.. (2004). Molecular structure of double-minute chromosomes bearing amplified copies of the epidermal growth factor receptor gene in gliomas. Proc. Natl. Acad. Sci. U.S.A.. 101, 11368-11373;
- Richard P. Koche, Elias Rodriguez-Fos, Konstantin Helmsauer, Martin Burkert, Ian C. MacArthur, et. al.. (2020). Publisher Correction: Extrachromosomal circular DNA drives oncogenic genome remodeling in neuroblastoma. Nat Genet. 52, 464-464;
- Yanfen Zhu, Amit D. Gujar, Chee-Hong Wong, Harianto Tjong, Chew Yee Ngan, et. al.. (2021). Oncogenic extrachromosomal DNA functions as mobile enhancers to globally amplify chromosomal transcription. Cancer Cell. 39, 694-707.e7;
- Erik N. Bergstrom, Jens Luebeck, Mia Petljak, Azhar Khandekar, Mark Barnes, et. al.. (2022). Mapping clustered mutations in cancer reveals APOBEC3 mutagenesis of ecDNA. Nature. 602, 510-517;
- Ke Xu, Liang Ding, Ti-Cheng Chang, Ying Shao, Jason Chiang, et. al.. (2019). Structure and evolution of double minutes in diagnosis and relapse brain tumors. Acta Neuropathol. 137, 123-137;
- Повтор, еще повтор!;
- Hiromi Wada, Reo Hamaguchi, Ryoko Narui, Hiromasa Morikawa. (2022). Meaning and Significance of “Alkalization Therapy for Cancer”. Front. Oncol.. 12;
- Roel G. W. Verhaak, Vineet Bafna, Paul S. Mischel. (2019). Extrachromosomal oncogene amplification in tumour pathogenesis and evolution. Nat Rev Cancer. 19, 283-288;
- Ofer Shoshani, Simon F. Brunner, Rona Yaeger, Peter Ly, Yael Nechemia-Arbely, et. al.. (2021). Publisher Correction: Chromothripsis drives the evolution of gene amplification in cancer. Nature. 591, E19-E19;
- Raymond E., Faivre S., Weiss G., McGill J., Davidson K., Izbicka E., Kuhn J. G., Allred C., Clark G. M., Von Hoff D. D. (2001). Effects of hydroxyurea on extrachromosomal DNA in patients with advanced ovarian carcinomas. Clin Cancer Res. 7, 1171–1180;
- Alexander Valent, Jean Bénard, Bernard Clausse, Michel Barrois, Dominique Valteau-Couanet, et. al.. (2001). In Vivo Elimination of Acentric Double Minutes Containing Amplified MYCN from Neuroblastoma Tumor Cells Through the Formation of Micronuclei. The American Journal of Pathology. 158, 1579-1584;
- King L. Hung, Kathryn E. Yost, Liangqi Xie, Quanming Shi, Konstantin Helmsauer, et. al.. (2021). ecDNA hubs drive cooperative intermolecular oncogene expression. Nature. 600, 731-736.


Комментарии
0Чтобы оставить комментарий, необходимо
войти