

Нобелевская премия по физиологии и медицине 2026: куда приводит интерес к водорослям (спойлер: к оптогенетике)
06 октября 2026
Нобелевская премия по физиологии и медицине 2026: куда приводит интерес к водорослям (спойлер: к оптогенетике)
- 39
- 0
- 0

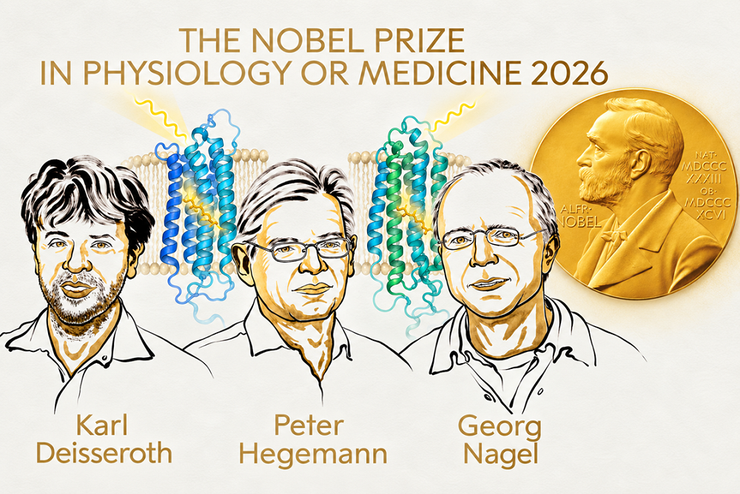
Шведская королевская академия наук решила присудить Нобелевскую премию по физиологии и медицине 2026 года Карлу Дайссероту, Петеру Хегеманну и Георгу Нагелю за светоуправляемые ионные каналы и оптогенетику.
Рисунок в полном размере.
коллаж по изображению Нобелевского комитета, сделанный с использованием GPT 5.6 Sol.
-
Автор
-
Редакторы


Трудно указать конкретный момент появления оптогенетики. Петер Хегеманн предположил существование необычно быстрого светочувствительного канала, а его группа нашла гены соответствующих белков. Георг Нагель экспериментально показал, что эти белки действительно так и работают, и охарактеризовал быстрый катионный канал ChR2. Карл Дайссерот перенес ChR2 сначала в нейроны, а затем и в живой мозг, превратив это открытие в инструмент управления активностью нейронных популяций.
Исследователи и раньше вмешивались в работу мозга с помощью электрической стимуляции, фармакологических воздействий и повреждения отдельных областей. Оптогенетика позволила делать это гораздо избирательнее и точнее во времени: изменять активность выбранных клеток в миллисекундном масштабе и наблюдать последствия для нервной системы и поведения, делая выводы о функции конкретных клеток и нейронных цепей.
История метода сложилась из очень разных исследовательских траекторий. Дайссерот пришел к нему из психиатрии, Хегеманн около пятнадцати лет пытался понять, как одноклеточная водоросль реагирует на свет, а Нагель специализировался на мембранных белках и ионных токах. В итоге исследования, первоначально далекие от задачи управления мозгом, сошлись в этом удивительном методе современной нейронауки.
Нобелевскую премию по физиологии и медицине 2026 года получили Карл Дайссерот, Петер Хегеманн и Георг Нагель — за открытия, связанные со светоуправляемыми ионными каналами и оптогенетикой. Но путь к этому способу управления мозгом начался не с нейронов, а с вопроса о том, как одноклеточная зеленая водоросль Chlamydomonas понимает, откуда падает свет (рис. 1).
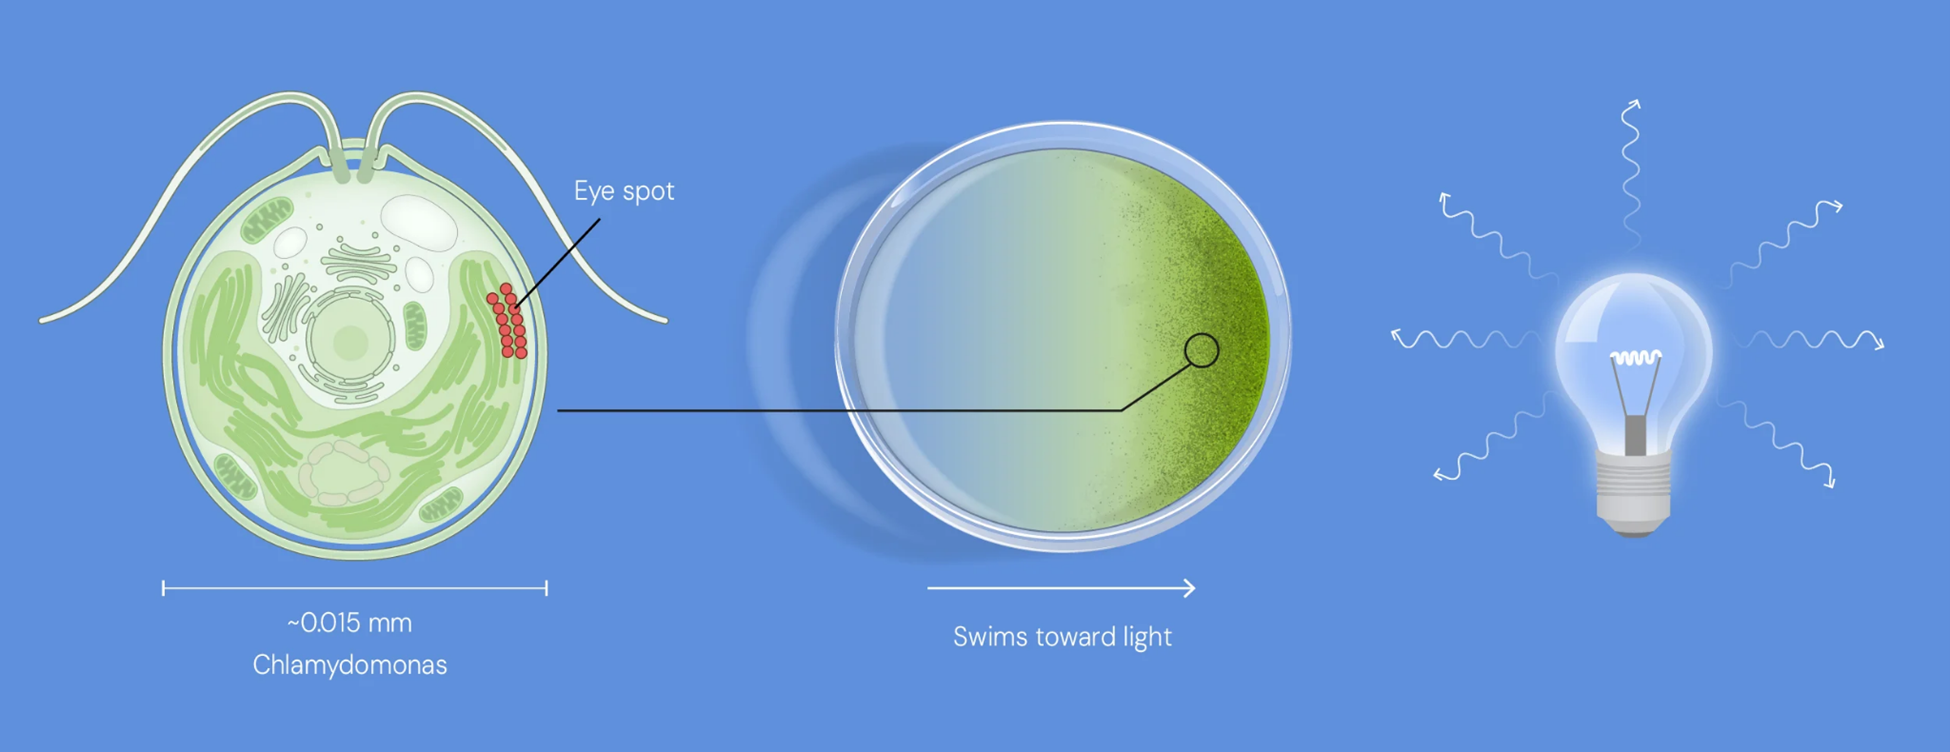
Рисунок 1. Chlamydomonas умеет ориентироваться по свету: при умеренном освещении она плывет к его источнику. Трудно было предположить, что изучение этой древней способности приведет к идее, поначалу казавшейся маргинальной, а затем — к одному из основных методов современной нейронауки и практическим применениям далеко за ее пределами.
Свет как способ управлять клеткой
Еще в 1999 году Фрэнсис Крик писал, что для исследования мозга нужен способ быстро включать и выключать нейроны определенного типа, почти не затрагивая остальные. В качестве сигнала он предложил свет: им можно точно управлять во времени и пространстве. Сам Крик признавал, что идея выглядит довольно фантастической [1].
Попытки управлять клетками светом начались задолго до современной оптогенетики. В 1971 году Ричард Форк показал, что нейроны морского моллюска Aplysia обладают слабой собственной чувствительностью к лазерному свету, и их можно стимулировать [2]. В 1983 году Айра Фарбер и Амирам Гринвальд окрашивали мембраны нейронов пиявки флуоресцентным красителем, а затем освещали лазером [3]. Это действительно вызывало деполяризацию и потенциалы действия, но интенсивный лазер и красители повреждали клетки (увы).
В 2002 году группа Геро Мизенбёка сделала обычные нейроны светочувствительными с помощью нескольких белков зрительной системы дрозофилы. Такие эксперименты доказали, что идея осуществима [4]. Но системы оставались громоздкими: требовали нескольких генов или дополнительных химических веществ, а сигнал нередко проходил через цепочку внутриклеточных реакций и был слишком медленным. Нужен был один белок, который можно закодировать одним геном и который сам непосредственно превращал бы свет в поток ионов через мембрану.
Подсказка пришла от микроорганизмов — подходящий принцип уже существовал в природе. В 1971 году Дитер Остерхельт и Вальтер Штёкениус обнаружили бактериородопсин [5], а в 1973-м показали, что под действием света он создает протонный градиент через мембрану [6]. Однако бактериородопсин был ионным насосом; для быстрого управления нейронами гораздо удобнее был бы светоуправляемый канал.
Канал, которого еще никто не видел
В начале 1990-х Хегеманн (рис. 2) и коллеги пытались измерить электрический ответ Chlamydomonas на свет, но столкнулись с технической проблемой: плотная клеточная стенка водоросли сильно мешала электрофизиологической записи. Важную роль здесь сыграла американская исследовательница Урсула Гудинаф, специалистка по Chlamydomonas. Она поддержала проект и передала группе Хегеманна мутантную линию водоросли с дефектной клеточной стенкой. Именно на этих клетках Хегеманн и его аспирант Хартман Харц смогли нормально регистрировать световые токи.
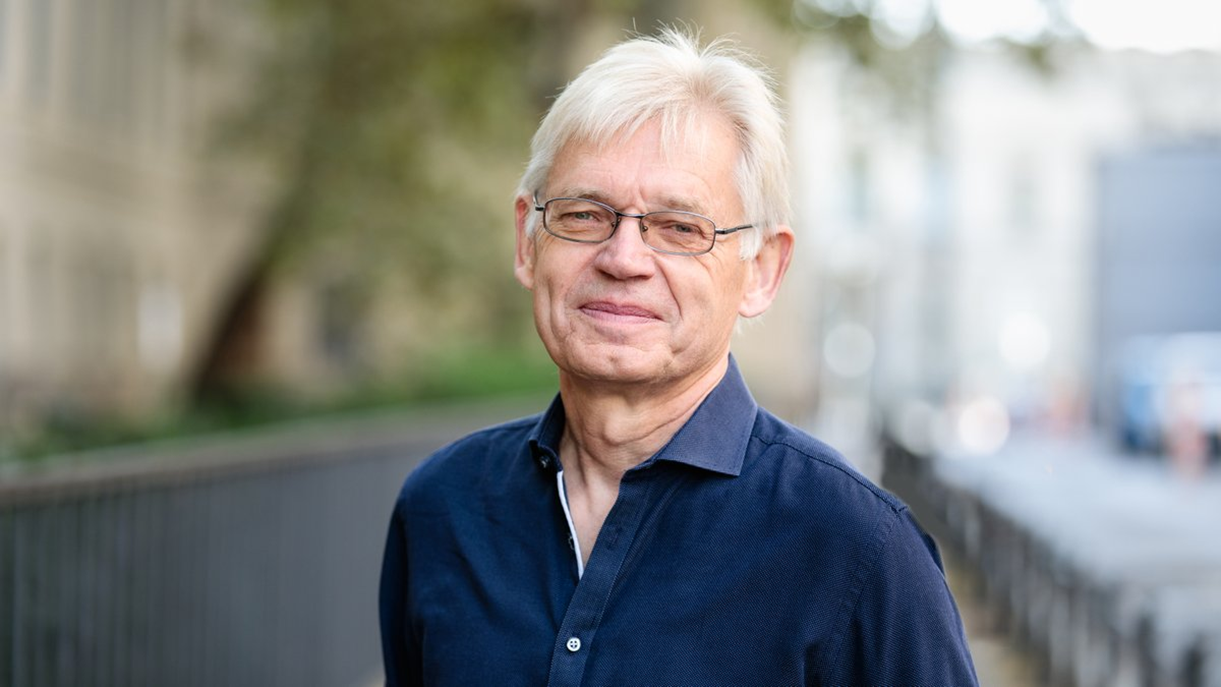
Рисунок 2. Петер Хегеманн, родившийся в 1954 году, изучал фотобиологию микроорганизмов. Он вырос в семье врачей, но выбрал биофизику и занялся мало популярной тогда темой — как зеленые водоросли реагируют на свет. Он рассчитывал найти их светочувствительный белок примерно за год; позднее вспоминал: «Я думал, что справлюсь за год. На самом деле понадобилось пятнадцать». Проект долго плохо финансировался, попытки выделить белок проваливались, а гипотеза Хегеманна о том, что родопсин может быть непосредственно связан с ионным каналом, встречала скепсис. Реакцию коллег он передавал так: «Это невозможно: ионный канал и родопсин — совершенно разные вещи». Именно эту гипотезу позднее подтвердили эксперименты с каналродопсином.
Оказалось, что реакция Chlamydomonas на свет необычайно быстрая: ток возникал через доли миллисекунды. Для сравнения, в человеческом глазу свет запускает многоступенчатую биохимическую цепочку, поэтому электрический ответ развивается медленнее. В работе Харца и Хегеманна 1991 года [7] года были зарегистрированы быстрые входящие токи, связанные с областью светочувствительного глазка и жгутиков. Их кинетика подтолкнула Хегеманна к гипотезе, что светочувствительный белок и ионный канал могут быть непосредственно связаны — или даже объединены в одной молекулярной системе.
Гипотеза была смелой: тогда еще не было доказано существование ионного канала, который сам открывается непосредственно под действием света. Хегеманн пытался выделить предполагаемый белок из глазка водоросли, но вне естественной мембраны такие белки оказывались нестабильными и плохо поддавались изучению.
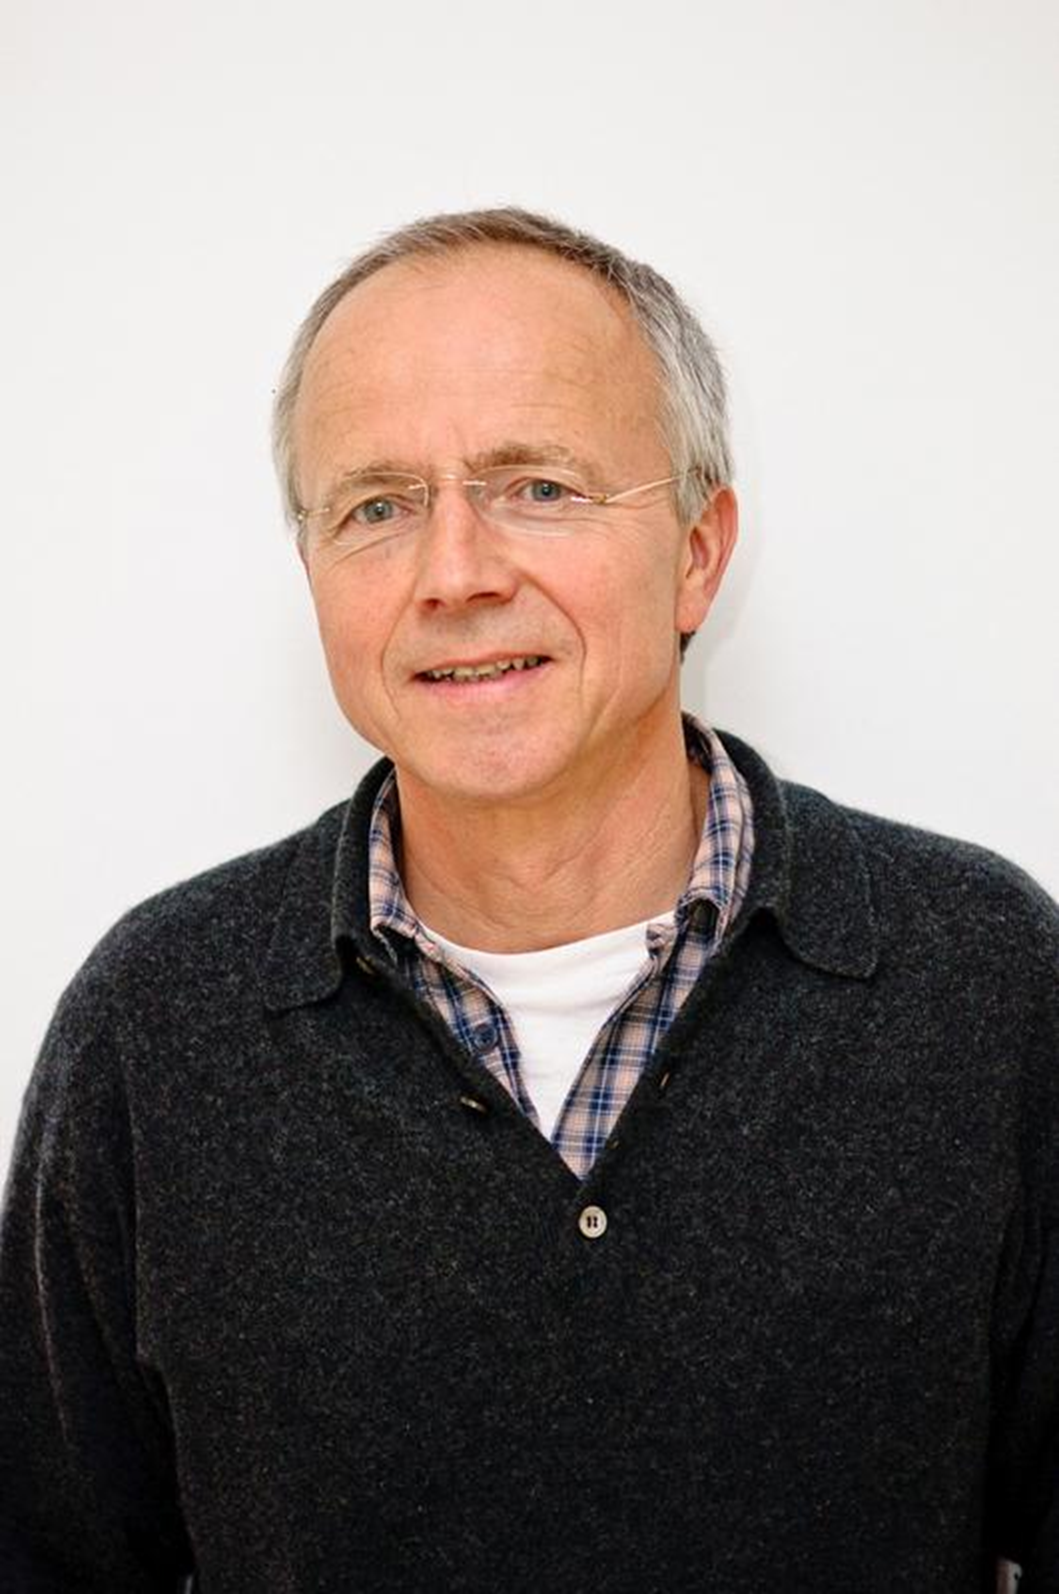
Рисунок 3. Георг Нагель родился в 1953 году в Вайнгартене в Германии. В детстве из-за тяжелой болезни он неоднократно проводил каникулы в больнице, а дома увлекался научными конструкторами — собирал радиоприемники и модели паровых машин. Позже изучал биологию в Университете Констанца, где начал работать с ионными каналами и электрофизиологией в лаборатории Эрнста Бамберга. После университета Нагель некоторое время преподавал в частной школе в Швейцарии, вместе с друзьями открыл Café Chaos и занимался дельтапланеризмом, а затем вернулся в науку и присоединился к группе Бамберга в Институте биофизики Макса Планка. В 1988 году он защитил докторскую диссертацию во Франкфуртском университете. Именно в лаборатории Бамберга Нагель впервые познакомился с Петером Хегеманном — задолго до их совместной работы над каналродопсинами.
Ситуацию изменила генетика. К началу 2000-х стали доступны последовательности тысяч генов Chlamydomonas. Группа Хегеманна нашла две последовательности, похожие на гены известных светочувствительных белков, и назвала их Chop1 и Chop2 — channelopsin-1 и channelopsin-2. Но сходство последовательностей еще не доказывало, что соответствующие белки действительно являются светоуправляемыми ионными каналами. Для этого понадобились уже эксперименты Георга Нагеля (рис. 3).
Нагель умел изучать родопсины в ооцитах Xenopus laevis — крупных яйцеклетках шпорцевой лягушки, удобных для экспрессии чужеродных белков и электрофизиологических измерений. Хегеманн передал Нагелю клонированные последовательности Chop1 и Chop2. В ооциты вводили соответствующую мРНК, после чего клетки сами синтезировали белок и встраивали его в мембрану. Теперь можно было подать свет и измерить ток. В 2002 году команда показала, что Chop1 действительно обеспечивает светозависимую проводимость и сам белок достаточен для работы канала [8]. Его переименовали в channelrhodopsin-1 (ChR1).
Еще важнее оказался следующий результат. В 2003 году Нагель, Хегеманн и коллеги охарактеризовали второй белок — channelrhodopsin-2 (ChR2). Под действием синего света канал открывался примерно за 0,2 миллисекунды и пропускал положительно заряженные ионы. Ген, кодирующий белок ChR2, перенесли также в клетки почки человека и хомяка, и те становились светочувствительными. То есть один ген был способен превратить другую клетку в объект, электрической активностью которого можно управлять светом. В статье 2003 года авторы уже предложили использовать ChR2 как инструмент для создания электрических импульсов в клетках [9].
Открытие каналродопсинов запустило гораздо более широкое направление исследований микробных родопсинов — поиска новых светочувствительных белков, изучения их структуры и попыток изменить их свойства. Эти работы получили продолжение и в России. В лаборатории перспективных исследований мембранных белков МФТИ исследовали структуру и механизмы работы различных микробных родопсинов и разрабатывали на их основе новые оптогенетические инструменты. О работе лаборатории «Биомолекула» рассказывала в материале «Лаборатория перспективных исследований мембранных белков: от гена к ангстрему» [10], а о конкретных поисках и инженерии новых родопсинов — в статье «Свет, камера, ... нервный импульс!» [11].
Эта линия исследований продолжается и сегодня. Российские исследователи внесли заметный вклад и в современное изучение самих каналродопсинов. В 2025 году большая международная команда с участием ученых МФТИ и Объединенного института ядерных исследований получила структуры вирусного каналродопсина OLPVR1 в закрытом и открытом состояниях с разрешением 1,1 и 1,3 Å — фактически на атомном уровне. Это позволило подробно проследить, как перестраиваются ретиналь и аминокислотные остатки, образующие «ворота» канала, когда свет переводит белок в открытое состояние, и использовать полученные данные для конструирования вариантов с улучшенными свойствами для оптогенетики [12]. В 2026 году та же исследовательская линия продолжилась работой о том, как ионы кальция блокируют OLPVR1: значительная часть авторов этой статьи также представляла МФТИ, а результаты авторы рассматривают как основу для разработки новых инструментов кальциевой оптогенетики [13].
Из водоросли — в нейрон
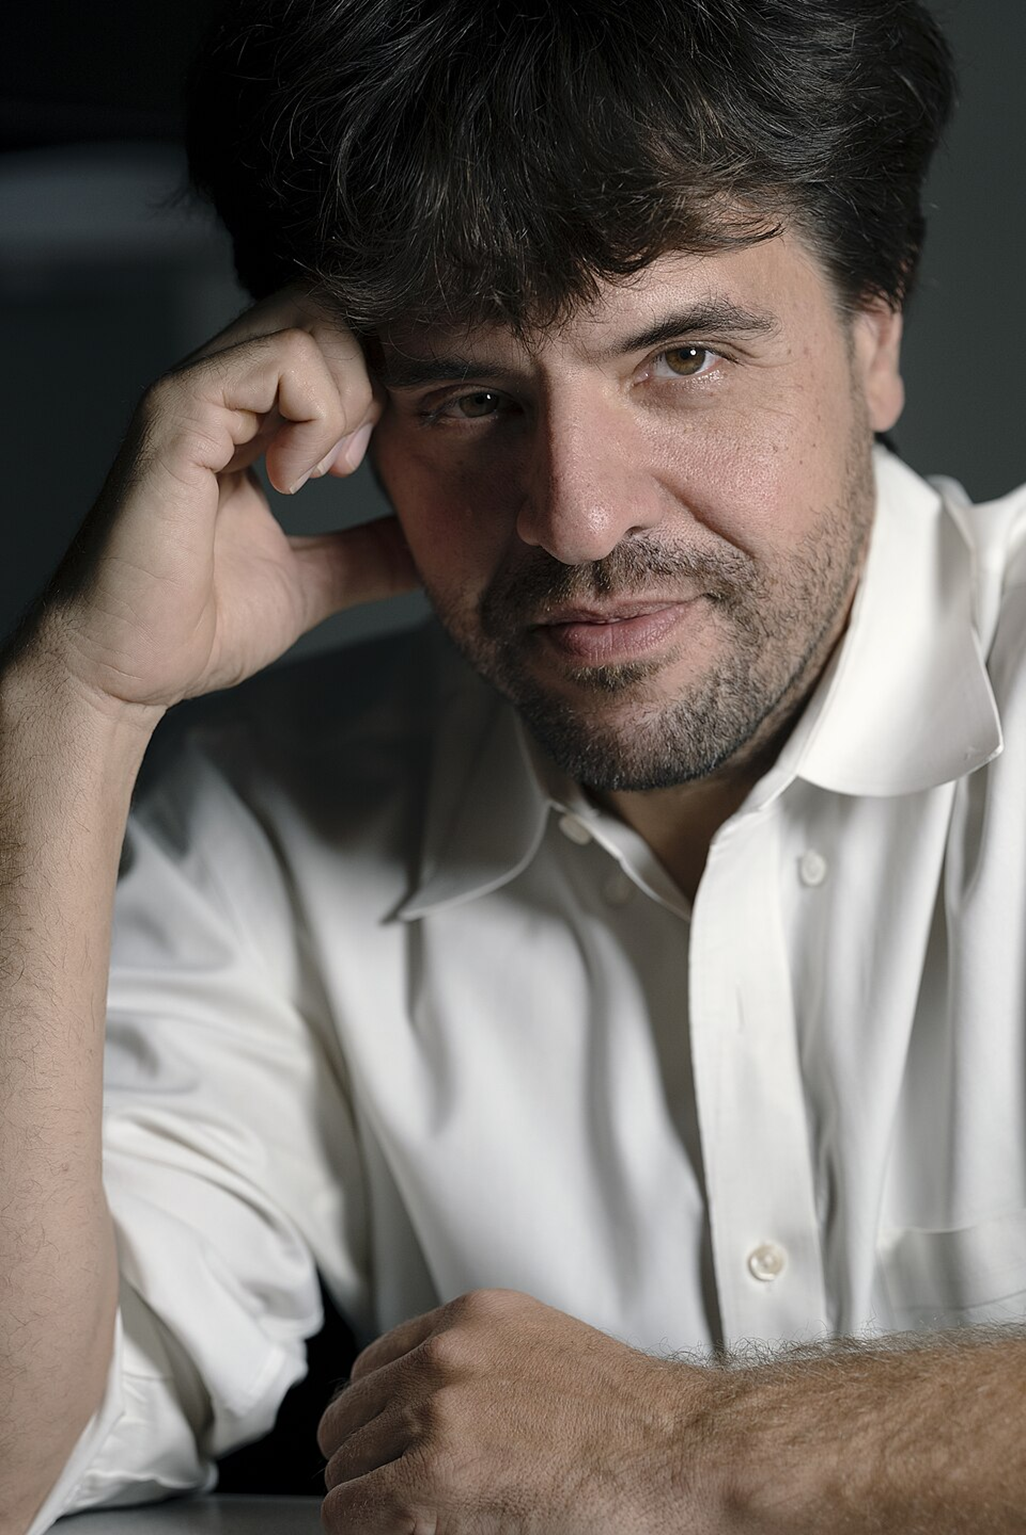
Рисунок 4. Карл Дайссерот родился в 1971 году, вырос в семье врача и учительницы химии и сначала мечтал стать писателем. В Гарварде он увлекся вопросом о том, как молекулярные процессы в мозге порождают ощущения, мышление и поведение, а интерес к психиатрии появился у него только на последнем курсе медицинского факультета. Позже он говорил, что психиатрия привлекла его обилием тайн и огромной потребностью в новых подходах. Свою исследовательскую философию Дайссерот однажды сравнил со строительством нового инструмента: «Мы хотим построить телескоп, чтобы увидеть часть неба, которую еще никто не видел».
Третья часть истории связана с Карлом Дайссеротом (рис. 4). В Стэнфорде он получил подготовку и врача, и нейробиолога, а затем работал психиатром. Встречаясь с пациентами с тяжелыми психическими расстройствами, Дайссерот видел ограничения существующего лечения и все сильнее интересовался тем, как конкретные нейронные цепи создают патологические состояния и поведение. Для этого мало было исследовать срез мозга. Дайссероту нужен был способ вмешиваться в работу определенных нейронов в живой системе. Его лаборатория тестировала разные белки, способные управлять электрической активностью клетки. Узнав о ChR2, Дайссерот написал Нагелю и получил конструкцию с геном каналродопсина.
Было неизвестно, сможет ли нейрон млекопитающего правильно синтезировать белок водоросли, встроить его в мембрану и при этом остаться работоспособным. Но в культуре нейронов крысы ChR2 экспрессировался без заметной токсичности. При освещении синим светом через мембрану шел ток и возникали потенциалы действия. В 2005 году группа Дайссерота опубликовала работу, показавшую миллисекундное оптическое управление нейронной активностью. Фундаментальное открытие, сделанное при исследовании поведения водорослей, превратилось в инструмент нейронауки [15].
У системы оказалось еще одно важное преимущество. Для работы ChR2 нужен ретиналь — светочувствительный кофактор, который вообще-то совершенно обычен для опсинов: именно производное витамина A, ретиналь, поглощает свет и запускает работу зрительных пигментов наших глаз . Для первых оптогенетических экспериментов было важно понять, придется ли ретиналь дополнительно доставлять в мозг. Оказалось, что нет: эндогенного ретиналя в ткани мозга млекопитающих достаточно для работы белка ChR2. Поэтому практическая схема становилась сравнительно простой: доставить ген ChR2 в нужные клетки, а затем подать свет.
О том, как это происходит в зрительном родопсине, «Биомолекула» подробно рассказывала в статье «Зрительный родопсин — рецептор, реагирующий на свет» [16].
В 2006 году новый подход получил название «оптогенетика» . А в 2007-м группа Дайссерота перенесла метод из чашки Петри в живой мозг. Ген ChR2 доставили в определенные нейроны моторной коры мыши, а свет подавали через тонкое оптоволокно. Освещение вызывало активность клеток и движение усов. При этом важен был не только сам факт световой стимуляции, но и ее избирательность: ChR2 экспрессировался преимущественно в возбуждающих нейронах моторной коры [17].
О том, как ген светочувствительного белка доставляют в выбранные клетки и затем управляют их активностью светом, подробно рассказано в статье «Биомолекулы» «Светлая голова» [18].
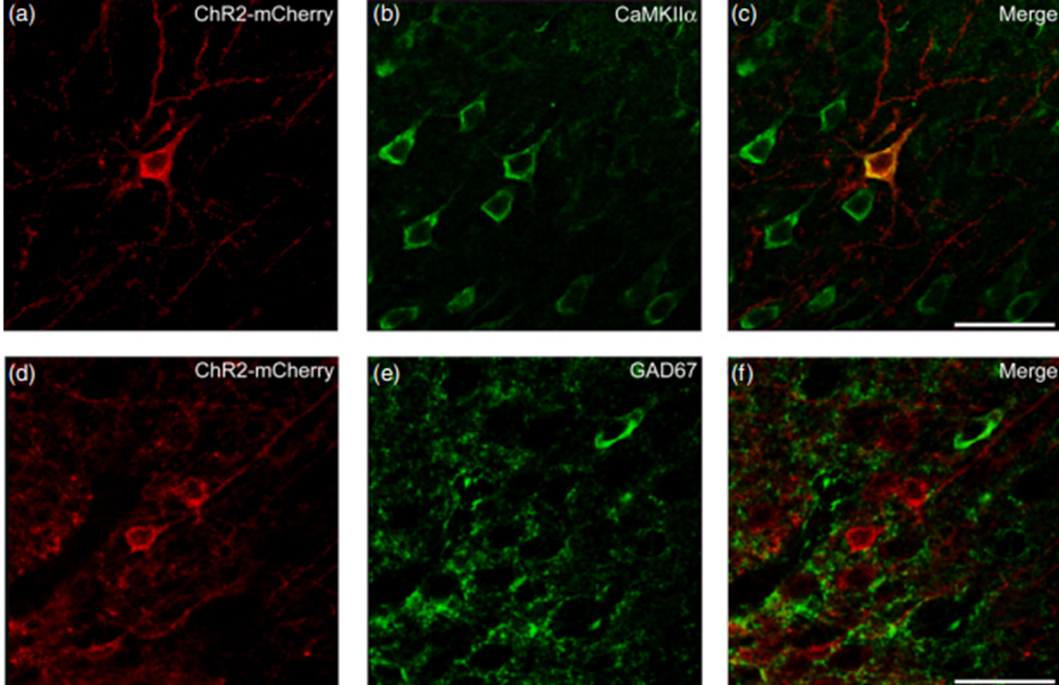
Рисунок 5. Светом — не по всем сразу. На снимках показано, как исследователи проверяли, в каких именно клетках моторной коры экспрессируется ChR2. Красным отмечен ChR2-mCherry. В верхнем ряду зеленым показан CaMKIIα — маркер возбуждающих нейронов; сигналы в значительной степени совпадают. В нижнем ряду зеленым отмечен GAD67 — маркер тормозных нейронов, и совпадения практически нет. В этой работе 95% ChR2-положительных клеток были CaMKIIα-положительными и ни одна из исследованных ChR2-положительных клеток не экспрессировала GAD67. Так оптогенетика позволяла воздействовать не просто на участок мозга, а на выбранный тип нейронов внутри него.
Включать — и выключать
ChR2 позволял возбуждать нейроны, но для исследования работы нейронных цепей было не менее важно уметь избирательно их тормозить. Первые такие инструменты представляли собой светоуправляемые ионные насосы, однако позднее появились и каналы, способные эффективнее изменять мембранный потенциал. В 2015 году были обнаружены природные анионные каналродопсины [19]: при освещении они пропускают через мембрану отрицательно заряженные ионы и позволяют подавлять возбуждение клетки. Другой путь — создание искусственных белков: в том же году исследователи сконструировали управляемый светом калиевый канал [20], открытие которого также снижает возбудимость клетки.
Так оптогенетика постепенно превратилась из одного инструмента для возбуждения нейронов в набор способов включать и выключать выбранные клеточные популяции. Одним из направлений, где это оказалось особенно полезно, стало исследование памяти: о том, как с помощью оптогенетики находят и активируют нейронные ансамбли, связанные с воспоминаниями, можно прочитать в материале «Технологии изучения клеточных механизмов памяти» [21].
От эксперимента — к терапии
Сегодня оптогенетика вышла за пределы фундаментальной нейронауки. Возможность вернуть светочувствительность сохранившимся клеткам сетчатки исследовали задолго до первых успешных опытов на людях — о ранних работах в этой области «Биомолекула» писала в материалах «Когда ослепшие прозреют?» [23] и «Вижу цель: новые технологии для незрячих» [24].
В 2021 году у пациента с пигментным ретинитом удалось частично восстановить зрение: сохранившиеся клетки сетчатки сделали светочувствительными, а специальные очки преобразовывали изображение в подходящие световые сигналы [25]. Эта система получила название GS030: она сочетает генную терапию, которая заставляет ганглиозные клетки сетчатки производить светочувствительный белок ChrimsonR; и специальные очки, проецирующие на сетчатку свет нужной длины волны (GenSight Biologics). Позднее улучшения наблюдали и у других участников испытания GS030, хотя терапия пока остается экспериментальной. Другой подход, MCO-010, продвинулся дальше: в 2026 году FDA приняло к рассмотрению заявку на его регистрацию для лечения тяжелой потери зрения при пигментном ретините.
Оптогенетику также рассматривают как основу для нового поколения кохлеарных имплантов . В экспериментах на животных световая стимуляция генетически модифицированных нейронов слухового нерва обеспечивала более пространственно локализованное возбуждение, чем электрическая, а в 2020 году был продемонстрирован многоканальный оптический имплант с микросветодиодами. Однако эта технология пока находится на доклинической стадии [26].
О том, зачем заменять электрическую стимуляцию слухового нерва световой и как устроен такой имплант, мы подробно рассказывали в материале «Поймать звук: от молекул до импланта, слышащего свет» [27].
Историю оптогенетики трудно свести к одному открытию. Хегеманн пытался понять, как водоросль реагирует на свет; Нагель выяснял, как работают мембранные белки; Дайссерот искал способ вмешиваться в активность определенных нейронных цепей. Ни одна из этих задач изначально не была сформулирована как создание новой технологии. Но именно их пересечение превратило каналродопсины из объекта фундаментальных исследований в один из основных инструментов современной нейронауки. А путь от Chlamydomonas к управлению сердцебиением, частичному восстановлению зрения и экспериментальным слуховым имплантам показывает, насколько трудно заранее предсказать практическое значение фундаментальной науки: вопрос о том, как одноклеточная водоросль ориентируется по свету, спустя десятилетия привел к способу управлять активностью отдельных клеток в живом организме.
Материал подготовлен по пресс-релизам Нобелевского комитета.
Литература
- Francis Crick. (1999). The impact of molecular biology on neuroscience. Phil. Trans. R. Soc. Lond. B. 354, 2021-2025;
- Richard L. Fork. (1971). Laser Stimulation of Nerve Cells in Aplysia. Science. 171, 907-908;
- Ira C. Farber, Amiram Grinvald. (1983). Identification of Presynaptic Neurons by Laser Photostimulation. Science. 222, 1025-1027;
- Boris V. Zemelman, Georgia A. Lee, Minna Ng, Gero Miesenböck. (2002). Selective Photostimulation of Genetically ChARGed Neurons. Neuron. 33, 15-22;
- DIETER OESTERHELT, WALTHER STOECKENIUS. (1971). Rhodopsin-like Protein from the Purple Membrane of Halobacterium halobium. Nature New Biology. 233, 149-152;
- Dieter Oesterhelt, Walther Stoeckenius. (1973). Functions of a New Photoreceptor Membrane. Proc. Natl. Acad. Sci. U.S.A.. 70, 2853-2857;
- Hartmann Harz, Peter Hegemann. (1991). Rhodopsin-regulated calcium currents in Chlamydomonas. Nature. 351, 489-491;
- Georg Nagel, Doris Ollig, Markus Fuhrmann, Suneel Kateriya, Anna Maria Musti, et. al.. (2002). Channelrhodopsin-1: A Light-Gated Proton Channel in Green Algae. Science. 296, 2395-2398;
- Georg Nagel, Tanjef Szellas, Wolfram Huhn, Suneel Kateriya, Nona Adeishvili, et. al.. (2003). Channelrhodopsin-2, a directly light-gated cation-selective membrane channel. Proc. Natl. Acad. Sci. U.S.A.. 100, 13940-13945;
- Лаборатория перспективных исследований мембранных белков: от гена к ангстрему;
- Свет, камера, … нервный импульс!;
- Dmitrii Zabelskii, Sergey Bukhdruker, Siarhei Bukhalovich, Fedor Tsybrov, Gerrit H. U. Lamm, et. al.. (2025). Ion-conducting and gating molecular mechanisms of channelrhodopsin revealed by true-atomic-resolution structures of open and closed states. Nat Struct Mol Biol. 32, 1347-1357;
- Oleksandr Volkov, Kirill Kovalev, Vitaly Polovinkin, Valentin Borshchevskiy, Christian Bamann, et. al.. (2017). Structural insights into ion conduction by channelrhodopsin 2. Science. 358;
- Georg Nagel, Bettina Möckel, Georg Büldt, Ernst Bamberg. (1995). Functional expression of bacteriorhodopsin in oocytes allows direct measurement of voltage dependence of light induced H+ pumping. FEBS Letters. 377, 263-266;
- Edward S Boyden, Feng Zhang, Ernst Bamberg, Georg Nagel, Karl Deisseroth. (2005). Millisecond-timescale, genetically targeted optical control of neural activity. Nat Neurosci. 8, 1263-1268;
- Зрительный родопсин — рецептор, реагирующий на свет;
- Alexander M Aravanis, Li-Ping Wang, Feng Zhang, Leslie A Meltzer, Murtaza Z Mogri, et. al.. (2007). An optical neural interface:in vivocontrol of rodent motor cortex with integrated fiberoptic and optogenetic technology. J. Neural Eng.. 4, S143-S156;
- Светлая голова;
- Обнаружены управляемые светом анионные каналы;
- Создан управляемый светом калиевый канал;
- Технологии изучения клеточных механизмов памяти;
- Brian Hsueh, Ritchie Chen, YoungJu Jo, Daniel Tang, Misha Raffiee, et. al.. (2023). Cardiogenic control of affective behavioural state. Nature. 615, 292-299;
- Когда ослепшие прозреют?;
- Вижу цель: новые технологии для незрячих;
- José-Alain Sahel, Elise Boulanger-Scemama, Chloé Pagot, Angelo Arleo, Francesco Galluppi, et. al.. (2021). Partial recovery of visual function in a blind patient after optogenetic therapy. Nat Med. 27, 1223-1229;
- Victor H. Hernandez, Anna Gehrt, Kirsten Reuter, Zhizi Jing, Marcus Jeschke, et. al.. (2014). Optogenetic stimulation of the auditory pathway. J. Clin. Invest.. 124, 1114-1129;
- Поймать звук: от молекул до импланта, слышащего свет.


Комментарии
0Чтобы оставить комментарий, необходимо
войти