

Молекулярная машина и ее аварийный комплект: что мы уже знаем о рибосоме и в чем еще не разобрались
22 октября 2026
Молекулярная машина и ее аварийный комплект: что мы уже знаем о рибосоме и в чем еще не разобрались

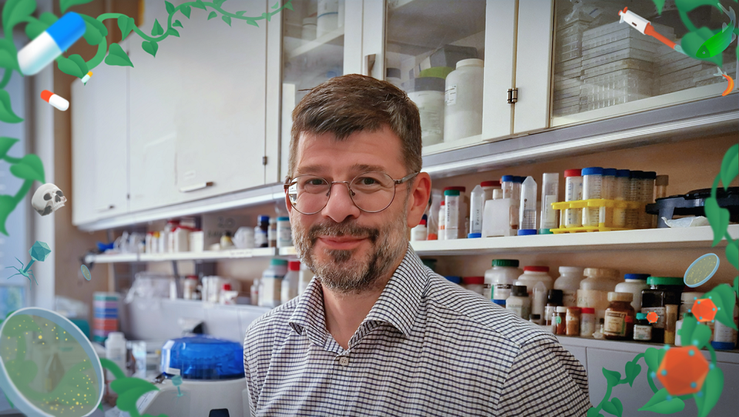
«То, какой фантастический прогресс совершила наша наука всего за два—три десятилетия, не может не восхищать» — Петр Сергиев.
Рисунок в максимальном разрешении.
-
Автор
-
Редакторы


Следующий выпуск спецпроекта «Биология в России: люди и открытия» — интервью с директором НИИ физико-химической биологии имени А. Н. Белозерского Петром Сергиевым. В этом разговоре мы обсудили рибосому, ее модификации и поведение этой молекулярной машины при нарушении привычных условий работы клетки. Петр Владимирович рассказал, зачем бактерии изменяют нуклеотиды рибосомной РНК, как ученые выясняют функции таких модификаций и почему некоторые элементы рибосомы становятся критически важными именно в стрессовых ситуациях. Отдельно затронули темы бактериальной конкуренции и работы систем ремонта поврежденных рибосом.
И, конечно же, поговорили о личном научном пути героя — от детского интереса к химии до многолетнего изучения одной из самых сложных молекулярных машин клетки.
Биология в России: люди и открытия
Обычно, когда говорят о научных открытиях, особенно в биологии, имеют в виду хорошо финансируемые научные учреждения «первого мира», а о России если и вспоминают, то лишь в свете лучей былой славы. Переломим же этот тренд и расскажем, что не перевелись еще науки о жизни на земле русской! С патриотизмом в душе в хорошем смысле этого слова, в этом спецпроекте поговорим с нашими современниками — исследователями из России, изучающими основы жизни: от молекулярных биологов до зоологов и ботаников. Здесь вас ждет серия интервью — как текстовых, так и в форме научно-популярных фильмов, образующих серию «Суперлаба».
Спецпроект реализуется при поддержке Министерства науки и высшего образования Российской Федерации в рамках инициативы «Десятилетие науки и технологий».
Партнер спецпроекта — компания BioinnLabs.
Министерство образования России активно содействует популяризации науки, поддерживает молодых исследователей и формирует передовую инфраструктуру для отечественных институтов и университетов.
«Десятилетие науки и технологий» — это масштабная государственная инициатива в России, проводимая с 2022 по 2031 год. Проект включает в себя комплекс инициатив, проектов и мероприятий. Все они направлены на усиление роли науки и технологий в решении важнейших задач развития общества и страны.
Компания BioinnLabs обеспечивает научно-исследовательские лаборатории высококачественными реагентами собственного производства и передовым оборудованием для биотехнологических и медицинских задач.
Под руководством Петра Сергиева сотрудники НИИ ФХБ имени А. Н. Белозерского МГУ изучают РНК-метилтрансферазы и функции модифицированных нуклеотидов, а также механизмы ремонта поврежденных рибосом . В этих исследованиях встречаются и фундаментальные вопросы о том, как устроены молекулярные машины, и вполне «военные» сюжеты: бактерии конкурируют друг с другом, повреждают рибосомы соперников, а затем используют собственные системы защиты и ремонта. Отдельное направление работы связано с генетическими коллекциями, позволяющими находить ферменты, отвечающие за конкретные модификации РНК.
На «Биомолекуле» есть ряд публикаций, которые мы приглашаем вас прочитать, если вы хотите узнать больше об РНК (рис. 1). К таким статьям относятся: «Чего вы не знаете о рибосоме...» [1], «Служба заботы о рибосомах. Как клетка следит за качеством своих молекулярных машин» [2] и «Обо всех РНК на свете, больших и малых» [3].
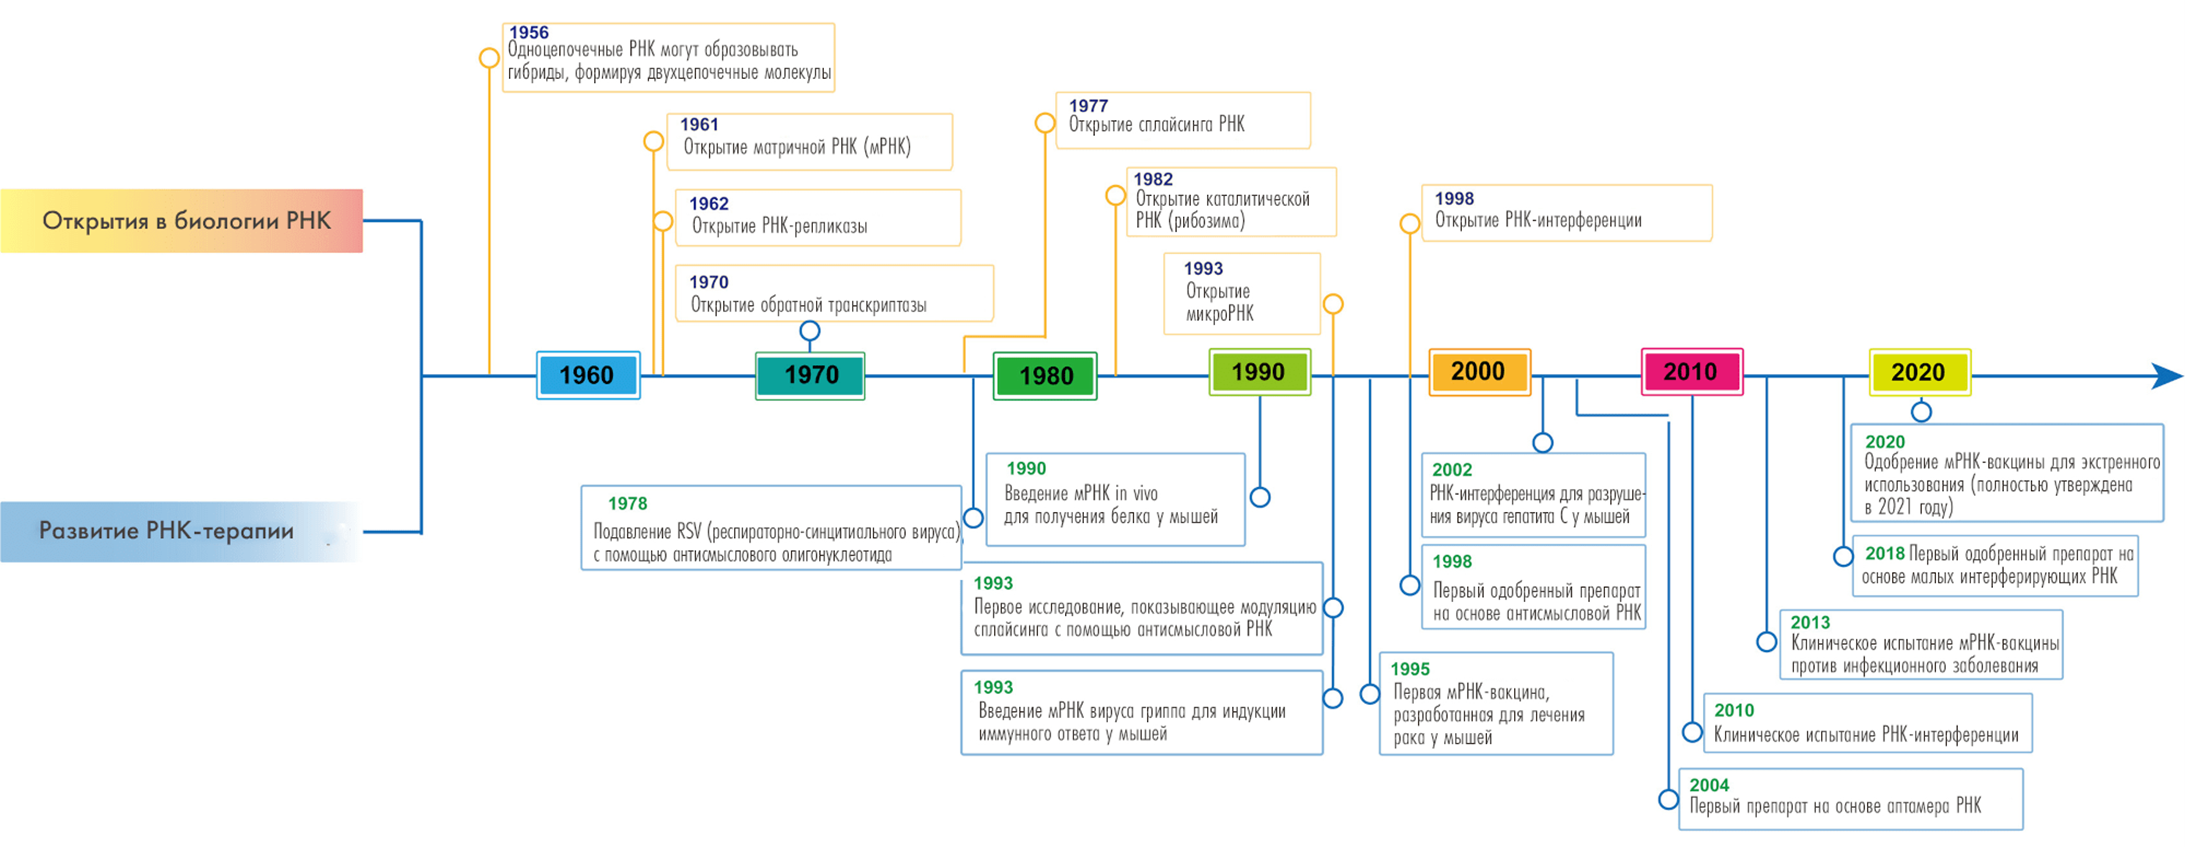
Рисунок 1. История изучения РНК насчитывает десятилетия работы специалистов по всему миру и важные, как для фундаментальной биологии, так и для медицины, открытия.
иллюстрация из статьи «РНК-терапия: новая глава в истории медицины» [4]
Сегодня мы (БМ) поговорим с Петром Сергиевым (ПС) о том, как он пришел из химии в биологию, почему некоторые детали функционирования рибосом становятся особенно важны только в необычных условиях и что еще предстоит узнать об одной из главных молекулярных машин клетки.
«Всегда хотел быть ученым»: династия, химический кружок и первые шаги в исследовании рибосомы
БМ: Как вы пришли в науку и почему выбрали именно этот путь? Я прочитала, что вы потомственный научный сотрудник: ваши папа (Владимир Петрович Сергиев) и дедушка (Петр Григорьевич Сергиев) тоже работали в науке — были эпидемиологами и паразитологами. Повлияло ли это каким-то образом на ваш выбор? Расскажите, пожалуйста.
ПС: На самом деле, я всегда хотел быть ученым. Не помню, чтобы когда-нибудь хотел стать кем-то еще, и в выборе научной области тоже особо не колебался. Как мне рассказывала мама, еще в детском саду воспитатели жаловались, что во время тихого часа я каким-то образом сбежал от нянечек, нашел где-то дохлую мышь, разложил ее на ладошке и с любопытством рассматривал. Это, конечно, привело воспитателей в ужас. Так что интерес к науке у меня появился довольно рано. Сначала я, как и многие дети, хотел изучать динозавров. Собирал всякие камушки из песчаника, в которых находил какие-то отпечатки. Потом увлекся энтомологией, насекомыми, а после этого — химией.
В химию я пришел довольно случайно. Однажды пришел к другу, а он получал водород. Я спросил: «А зачем вообще его получать? В чем интерес?». Он показал: «Вот, смотри, если спичку поднести, как здорово». И с этого момента я увлекся химией. Мне вообще повезло. Я хотел пойти в химический кружок, чтобы проводить какие-нибудь опыты, в том числе с пиротехникой, а попал в теоретический кружок. По какой-то ошибке во Дворце пионеров я оказался в кружке Сергея Евгеньевича Семенова. Там была практически одна теория — никакой практики вообще не было, — но мне почему-то это очень понравилось. С этого момента я уже всерьез стал заниматься химией, в результате поступил на химический факультет МГУ, хотя в итоге все равно оказался в области, которая находится где-то на стыке биологии и химии.
БМ: А как ваши научные интересы эволюционировали по ходу учебы? То есть как от химии вы постепенно перешли ближе к биологии?
ПС: Когда появилась возможность распределиться по кафедрам, я пошел на кафедру химии природных соединений МГУ. Вообще, еще при поступлении я хотел заниматься чем-то на стыке биологии и химии. Сначала мы изучали структуры рибосомы с помощью химических сшивок. Вносили в рибосомную РНК специальные сшивающие реагенты и смотрели, с какими участками РНК конкретный фрагмент оказывается рядом в рибосоме. Мы сотрудничали с Ричардом Бримакомбом в Берлине — именно там занимались этими сшивками, — а затем начали работать с Альбертом Далбергом в Брауновском университете в Провиденсе (США). Там меня научили генетической инженерии: как делать мутации, как проводить соответствующие эксперименты. И я стал изучать, зачем нужны те или иные участки рибосомы.
Занимаясь этим, мы использовали довольно мейнстримный подход. Если мы хотим понять, как работает та или иная молекулярная машина, можно начать что-то в ней ломать и смотреть, что получится, что именно перестанет работать. Этой логики я до сих пор придерживаюсь, только сейчас мы изучаем функцию целых генов, в том числе тех, что кодируют модифицирующие РНК ферменты.
От «спасательного жилета» рибосомы к мыши с пушистым хвостом: модификации РНК, редкие мутации и регуляция генома
БМ: Когда стало понятно, как устроена рибосома, на первый план вышел другой вопрос: зачем нужны отдельные элементы этой молекулярной машины и какую роль играют ферментативные модификации РНК? Что вам удалось выяснить, когда вы начали экспериментально проверять функции отдельных участков рибосомы?
ПС: Да, структура рибосомы уже была определена методами рентгеноструктурного анализа и криоэлектронной микроскопии (крио-ЭМ) , поэтому необходимость изучать ее структуру с помощью химических сшивок в значительной степени отпала. Стало гораздо интереснее разбираться в том, как работает эта молекулярная машина и зачем нужны отдельные ее элементы: мы стали удалять их или вносить мутации и смотреть, что происходит.
Подробнее о методах структурной биологии можно узнать в статье «12 методов в картинках: структурная биология» [7].
И вот здесь возник еще один, немного философский вопрос. Мы привыкли считать, что у биомолекул есть определенная функция. Иногда можно приписать функцию отдельной аминокислоте, нуклеотиду РНК или какому-то структурному элементу. Но не так просто понять, чему именно можно приписать функцию внутри сложной молекулярной машины. Действительно ли каждый нуклеотид в рибосоме выполняет какую-то самостоятельную функцию?
Когда я начал делать мутации, довольно часто оказывалось, что ничего особенно драматичного не происходит. Машина не обязательно ломается и полностью перестает работать. Тогда у меня возникла мысль: есть же модифицированные нуклеотиды, и природа создала специальные ферменты для того, чтобы их модифицировать. Значит, у этих модификаций уж точно должна быть какая-то функция. Если у обычного нуклеотида отдельной функции может и не быть, то у модифицированного она, вероятно, должна существовать.
В целом, с модифицированными нуклеотидами оказалось, что они, по всей видимости, нужны для самых разных вещей и выполняют разные функции. При этом они тоже, как правило, не абсолютно необходимы. Большую часть таких нуклеотидов можно оставить немодифицированными — с бактерией ничего принципиального не произойдет, рибосома продолжит работать.
Если смотреть на исследования рибосомы в целом, сейчас видна определенная тенденция. Раньше в основном изучали базовые механизмы ее работы — основные стадии, декодирование, различные виды активности, перемещение тРНК в рибосоме и так далее. Сейчас все это уже достаточно хорошо изучено. Но оказалось, что существует еще огромное количество механизмов, белков и структурных элементов, которые нужны не постоянно, а в каких-то особых, редких ситуациях.
Мне нравится сравнивать это со спасательным жилетом. Если просто посадить человека в лодку в спокойных условиях, жилет вроде бы только мешает и непонятно, зачем он вообще нужен. Но когда человек оказывается в воде, становится понятно, что это очень важная вещь. Так и с рибосомой: некоторые элементы могут практически не проявлять себя в обычных лабораторных условиях, но становиться критически важными при определенных воздействиях.
Сейчас мы как раз изучаем такие механизмы. Оказалось, что на рибосому могут воздействовать разные белки, которые ее повреждают. Это, в частности, может быть связано с конкуренцией между бактериями . Некоторые бактерии производят так называемые колицины — это разнообразные белковые соединения, способные повреждать другие клетки, в том числе воздействовать на рибосомы.
О непростых отношениях между разными штаммами бактерий можно узнать больше в статье «Микробиологические войны: чем бактерии воюют друг с другом» [9].
И относительно недавно стало понятно, что у бактерий существует целый мир различных систем ремонта поврежденной рибосомы. Они способны исправлять повреждения, которые возникают, например, под действием колицинов. Получается довольно интересная система: одни бактерии производят средства нападения, а другие используют средства защиты и ремонта после такого нападения. Причем эти механизмы невозможно хорошо понять с помощью простых экспериментов. Нужно поставить бактерию в ситуацию, когда на нее действительно кто-то нападает. А в лабораторных условиях найти конкретного конкурента, который будет повреждать именно данную бактерию с помощью колицинов, довольно сложно. Но это одно из направлений, которыми мы сейчас занимаемся.
Я думаю, что и некоторые модификации рибосомных нуклеотидов могут быть нужны в редких случаях — например, для защиты рибосомы от каких-то воздействий, которые мы пока не очень хорошо понимаем. Для некоторых модификаций это уже показано. Например, известно, что определенные модификации транспортных РНК защищают их от разрезания РНКазами, которые используют бактерии-конкуренты. Для рибосомы это пока не так хорошо изучено, но вполне возможно, что подобные механизмы тоже будут обнаружены.
Вообще, сейчас многие исследуют системы ремонта рибосомы и механизмы ее деградации после повреждения. И здесь есть одна проблема: это очень редкие события. Если смотреть на бактерию в благоприятных условиях, когда большая часть рибосом не повреждена, даже повреждение одного процента рибосом может практически никак не проявиться. Если бактерия при этом начинает расти всего на один процент медленнее, это мало кто заметит, и долгое время такой процесс будет казаться неинтересным. Сейчас, однако, на системы ремонта рибосом и их деградации после повреждения обращают гораздо больше внимания.
БМ: Так зачем рибосоме нужны модификации рРНК?
ПС: Если говорить просто, то в некоторых случаях это обычная стабилизация структуры — заполнение пустот. Когда РНК сворачивается, это напоминает постройку дома не из кирпичиков, а из довольно сложных блоков вроде нуклеотидов. Получается как в тетрисе: где-то образуются зазоры, и метильные группы как раз затыкают эти пустоты, делая структуру более стабильной.
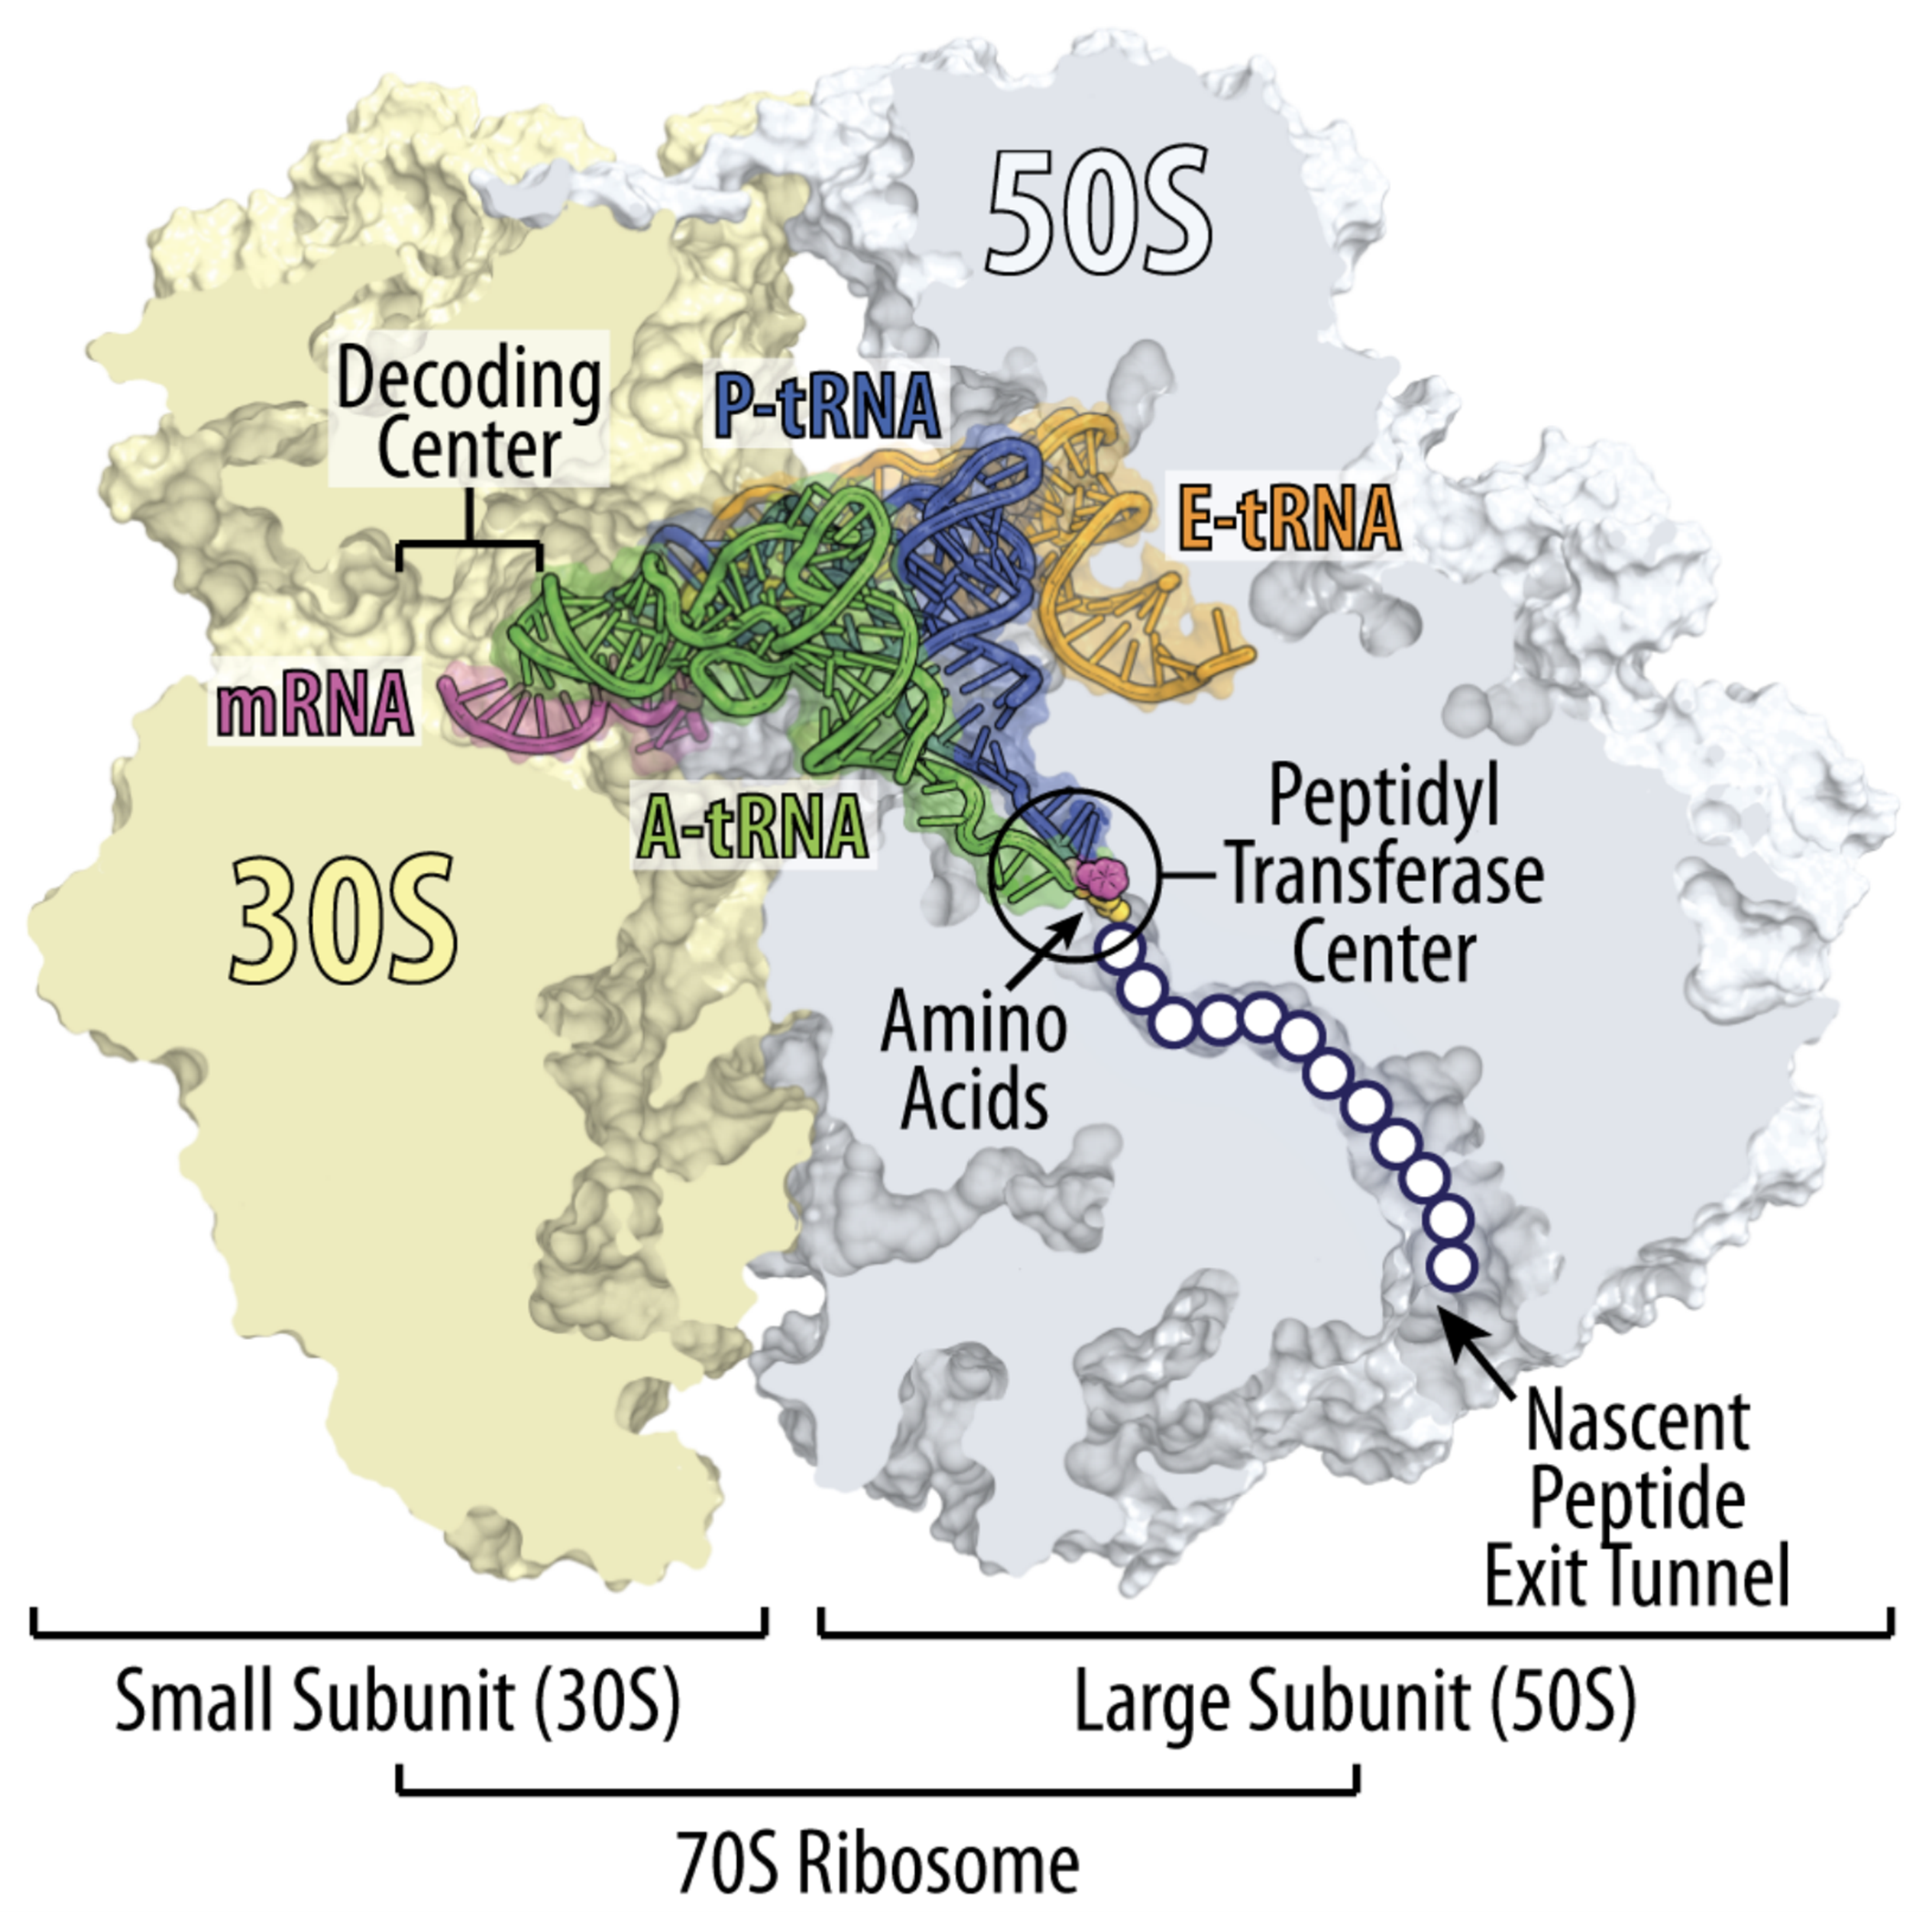
Рисунок 4. Архитектура рибосомы и контактные зоны лигандов. В состав 70S рибосомы входят малая (30S) и большая (50S) субъединицы. На стыке субъединиц расположены ключевые функциональные центры (декодирующий центр и пептидилтрансферазный центр), а также сайты связывания транспортных РНК (A-, P- и E-тРНК) и выходной туннель для растущей пептидной цепи. Модификации рРНК в этих областях стабилизируют межсубъединичные контакты и помогают точному позиционированию лигандов.
В других случаях метилирование служит отметкой контроля качества. Рибосома — сложный механизм, и ее сборка порой идет не по плану. Это похоже на сборку мебели по инструкции: если проявить невнимательность в самом начале, ближе к концу понимаешь, что сделал ошибку. Мы с сыном недавно собирали письменный стол, и на финальном этапе выяснилось, что направляющие оказались внутри ящиков. Пришлось все разбирать. С рибосомой происходит то же самое: РНК с определенной вероятностью сворачивается неправильно, а рибосомные белки, связываясь с ней, еще сильнее стабилизируют эту ошибочную структуру, после чего разобрать ее крайне сложно.
Некоторые РНК-метилтрансферазы выступают в роли своеобразного ОТК (отдела технического контроля). Они связываются с комплексом и блокируют дальнейшую сборку рибосомы до тех пор, пока не убедятся, что все идет правильно. Будучи чувствительными к конформации, при корректной структуре они навешивают метильную группу и уходят, давая зеленый свет продолжению сборки.
Наконец, в ряде случаев метильные группы работают как молекулярный клей или липучки: создавая гидрофобные контакты, они помогают лучше связываться либо лигандам (например, тРНК с рибосомой), либо самим рибосомным субчастицам друг с другом (рис. 4) [10]. Пожалуй, это основные их функции.
БМ: Вы упоминали, что ваш нынешний круг интересов сосредоточен в основном на создании генетических линий мышей. Я находила информацию, что у вас их получено уже более двадцати.
ПС: Уже больше. По последним подсчетам было порядка пятидесяти, а сейчас, наверное, еще больше. В какой-то момент пришло понимание: чтобы разобраться в работе живого, нужно научиться манипулировать геномом в исследовательских целях. Если мы хотим выяснить функцию конкретного гена, фрагмента белка или нуклеотида, нужно уметь направленно менять закодированную в геноме последовательность и наблюдать за последствиями.
Сначала мы отработали этот подход на бактериях: закрыли список метилированных нуклеотидов бактериальной рибосомы (рис. 5), для которых еще не были известны ферменты, а затем переключились на мышей. В плане рибосом и паттернов метилирования мыши и человек устроены практически одинаково. При этом у млекопитающих оставалось много белых пятен, особенно в отношении митохондриальных рибосом. Мы действовали в той же логике: создавали нокауты генов на клеточных линиях и мышах, после чего смотрели, какие модификации исчезают и к каким сбоям это приводит .
О том, как создаются генетические линии мышей для дальнейших исследований мы говорили также с Нариманом Баттулиным в интервью «ДНК в трех измерениях: как сибирские ученые изучают архитектуру генома» [11].
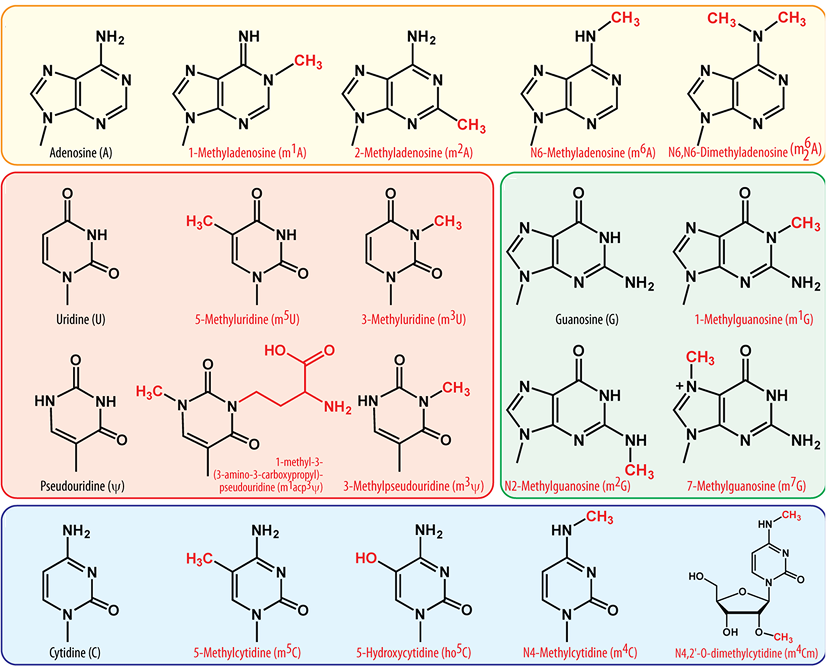
Рисунок 5. Разнообразие модификаций нуклеозидов РНК. Присоединение метильных и других функциональных групп (выделены красным) к стандартным нуклеозидам — аденозину (A), уридину (B), гуанозину (C) и цитидину (D) — меняет свойства РНК и работу молекулярных машин клетки. Идентификация ферментов, ответственных за внесение этих модификаций, позволяет ученым установить их точные функции в нормальных и стрессовых условиях.
По митохондриальным рибосомам у нас сложилось продуктивное сотрудничество со структурным биологом Алексеем Амунцом, который занимается криоэлектронной микроскопией митохондриальных рибосом и других макромолекулярных комплексов. Данные биохимии показали: в отсутствие METTL15 (одной из метилтрансфераз митохондриальной рибосомы) один из белков-сборщиков часто не может покинуть рибосому, тогда как при нормальной работе фермента он вовремя отделяется [12]. Проводя аналогию с конвейерной сборкой автомобиля: гаечный ключ не должен оставаться за обшивкой. В отсутствие контролера качества в лице метилтрансферазы белок-сборщик в заметном числе случаев оставался связанным с рибосомой.
Мы выяснили, что фермент действует именно на этапе работы этого сборщика. Затем в ходе совместной работы с Алексеем Амунсом удалось визуализировать весь комплекс (рис. 6) — результаты исследования опубликованы в статье Mechanism of mitoribosomal small subunit biogenesis and preinitiation в журнале Nature [13]. Методом крио-ЭМ Алексей расшифровал структуру и подтвердил наши биохимические выводы. Что касается продолжения совместной работы: мы не просто сотрудничаем — теперь Алексей приехал работать к нам в институт по программе мегагрантов и стал нашим коллегой.
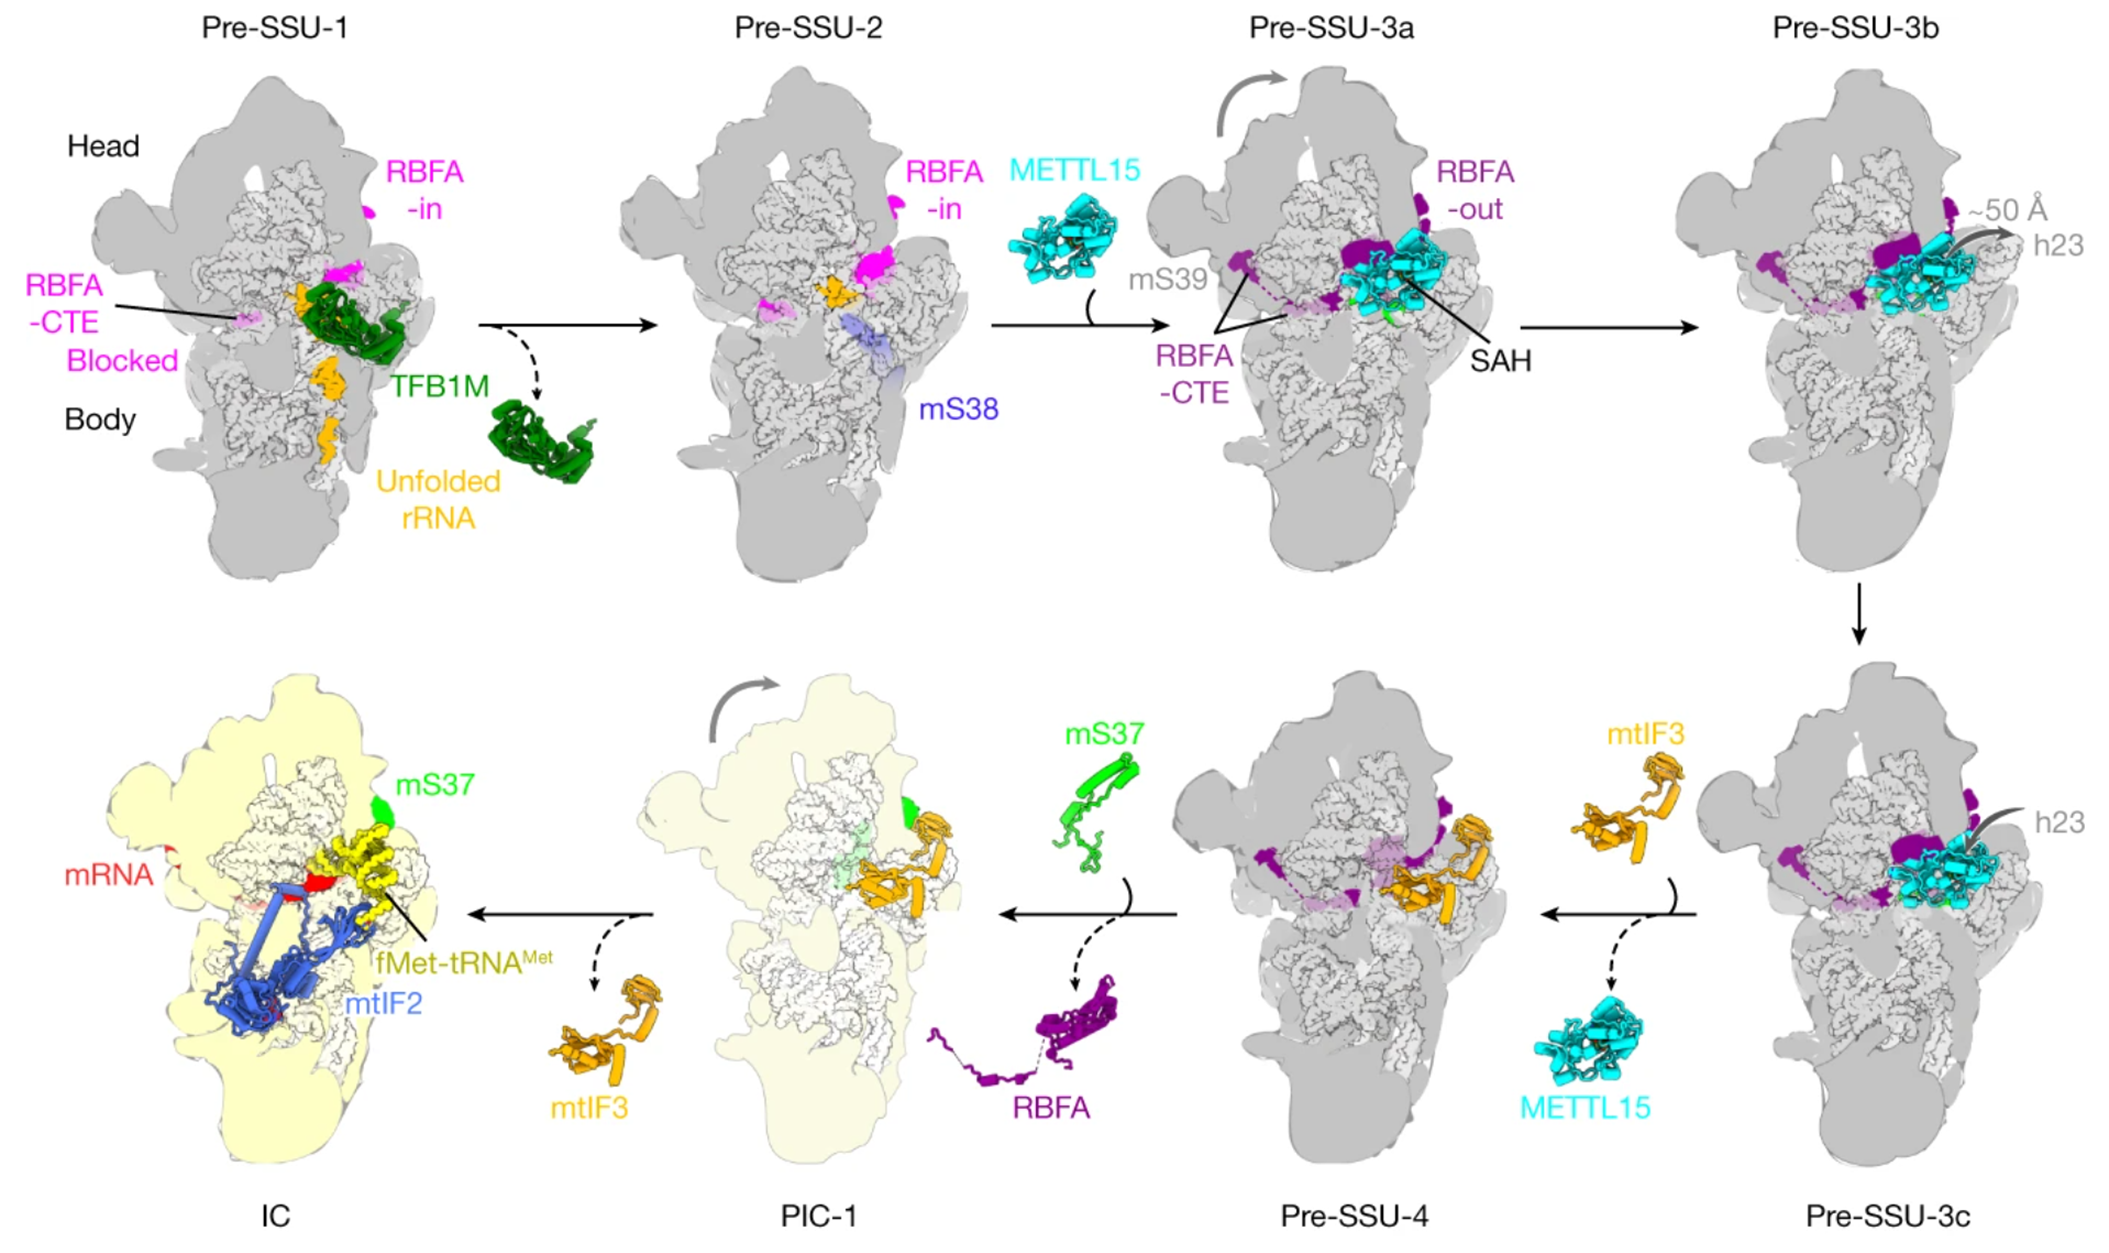
Рисунок 6. Модель этапной сборки и перехода к преинициации малой субъединицы митохондриальной рибосомы (pre-SSU). Схема иллюстрирует конвейерный процесс созревания рибосомы: последовательное подключение и удаление факторов сборки (таких как RBFA), включение рибосомальных белков и работу метилтрансфераз (например, METTL15). Работа фермента-метилтрансферазы служит «контролем качества», обеспечивая своевременный уход факторов-сборщиков с созревающей молекулярной машины.
БМ: Получается, этих мышей вы создаете преимущественно для изучения модификаций РНК?
ПС: Не только. Если говорить о работе с мышами, у нас выделилось несколько ключевых направлений. Первое — чисто прикладное, медицинское. Мы создаем модели (рис. 7) генетически обусловленных заболеваний. В базовом варианте это известные наследственные патологии. Мы сотрудничаем с медицинскими центрами и фармацевтическими компаниями: они используют наши модели для доклинических испытаний генотерапевтических препаратов, что приносит прямую практическую пользу.
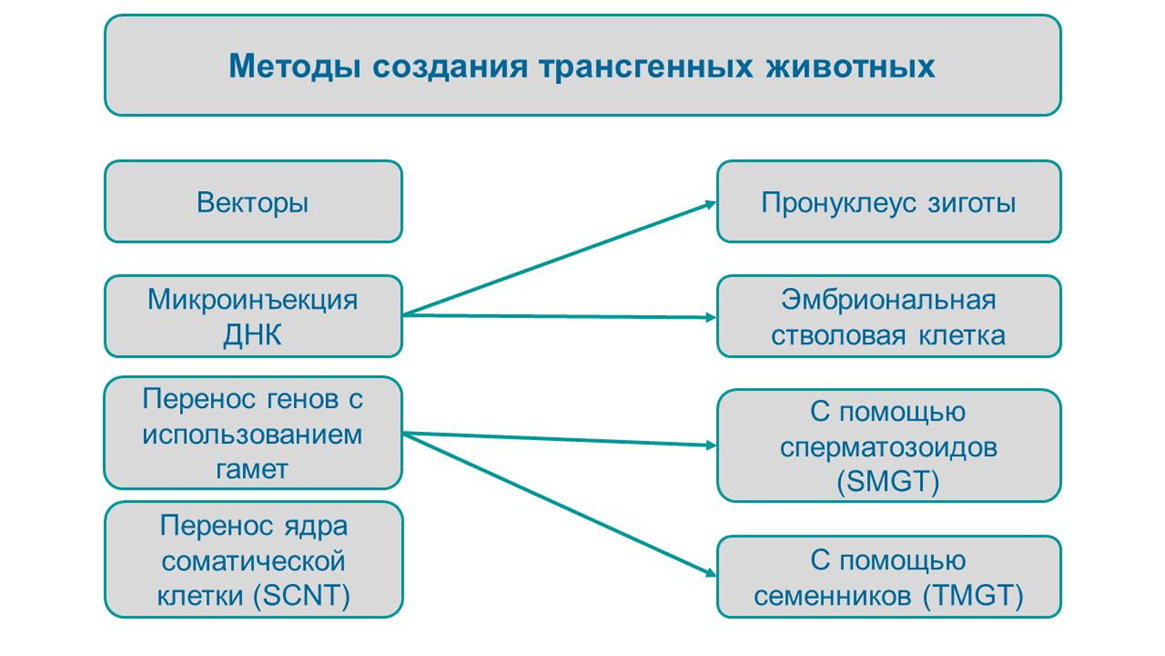
Рисунок 7. Методы получения трансгенных животных. Схема ключевых технологических путей введения целевых генетических конструкций (включая микроинъекции ДНК и генный перенос с помощью гамет) для создания мышиных моделей заболеваний. Сотрудники НИИ физико-химической биологии имени А. Н. Белозерского микроинъецируют смесь матричной РНК Cas9 (mRNA Cas9) и направляющей РНК (sgRNA). Первая кодирует фермент Cas9, который разрезает ДНК, а вторая направляет его к нужному участку генома. Это позволяет внести изменения в выбранный ген и исследовать, как его отсутствие влияет на работу клетки или организма.
Второе находится на стыке фундаментальной науки и клиники. Мы плотно взаимодействуем с медицинскими генетиками. Врачи регулярно сталкиваются с пациентами, у которых налицо тяжелое наследственное заболевание, однако вызвавшие его мутации в геноме ранее не описывались. В таких случаях генетики предполагают, что определенная мутация вызывает патологию, но строго доказать причинно-следственную связь можно лишь одним путем: воспроизвести эту мутацию на мыши и проверить, разовьется ли у животного аналогичная клиническая картина. Геномы больного и здорового человека, как и любых двух людей, различаются миллионами нуклеотидов. Хотя в процентном соотношении отличия составляют порядка 0,4%, среди этой массы мутаций не всегда очевидно, какая именно привела к сбою. Наша задача — экспериментально это подтвердить.
Помимо прикладных задач, мы ведем фундаментальные исследования, где беремся за изучение совершенно не изученных генов. В геноме человека около 20 тысяч генов, из которых совсем не исследованы сотни, а плохо изучены — тысячи. Усилия мирового научного сообщества распределены крайне неравномерно: одни гены (например, ключевые онкогены или онкосупрессоры) изучены вдоль и поперек, тогда как сотни других описаны лишь биоинформатически, и до них буквально «не доходили руки». Существует огромная серая зона генов, по которым есть от силы одна-две публикации.
Сейчас наши интересы смещаются от простого установления функций генов к исследованию механизмов регуляции их экспрессии. Полногеномный нокаут всех 20 тысяч генов — неподъемная задача для одной лаборатории, этим занимаются международные консорциумы. Но главное: чтобы понять логику формирования целого организма, недостаточно знать функцию каждого белка по отдельности. Белок — это инструмент, условный молоток. Если в организме исчезнут сразу все молотки, последствия будут повсеместными и хаотичными: развалится шкаф, сломается скамейка. По таким разрозненным проявлениям трудно восстановить исходную молекулярную функцию инструмента. Критически важно выяснить, где, когда и при каких условиях этот инструмент задействуется. В грубом приближении, за контекстный запуск программ в нужное время и в нужном месте отвечают энхансеры — дистантные регуляторные элементы ДНК. Для разных сценариев и этапов развития активируются разные регуляторные элементы.
В этом направлении у нас сейчас два проекта. Первый мы ведем совместно с Институтом биологии гена РАН (лаборатория С. В. Разина) и Институтом биологии развития РАН. Коллеги профессионально изучают трехмерную организацию генома и транскрипцию [17], а мы отвечаем за генетические модели мышей. Объектом стал локус кератинов — семейство из нескольких десятков генов, экспрессирующихся в эпителиальных тканях. В эпидермисе по мере созревания кератиноцитов происходит последовательное переключение экспрессии разных типов кератинов. По краям локуса расположены два ключевых энхансера. С помощью геномного редактирования мы инактивировали один из них. В результате нормальное созревание кератиноцитов нарушилось: переключения кератинов не произошло, что привело к аномалиям развития кожного покрова. Это наш первый опыт функциональной валидации регуляторного элемента на уровне целого организма.
Второй проект — попытка понять, как на регуляторном уровне кодируются сложные морфологические признаки. Моногенные признаки изучать сравнительно просто: выключил ген — получил поломку, как в классической генетике Менделя. Однако ключевые эволюционные адаптации (например, превращение конечностей в ласты у китообразных или способность рукокрылых к полету) полигенны. Не существует единого «гена ласт», мутация в котором вернула бы кита к четвероногому бегу. Набор генов у всех млекопитающих практически идентичен; различия определяются тем, как именно оркестрована работа этих генов во времени и пространстве через регуляторные сети.
Подобными вопросами занимаются, к примеру, в стартапе Джорджа Чёрча Colossal Biosciences. За медийной повесткой «воскрешения мамонта» стоит фундаментальная задача: отработать методологию переноса сложных полигенных признаков из одного генома в другой.
Мы запустили модельный проект для решения похожей задачи. Чтобы система была обозримой и реалистичной, мы выбрали наглядный признак: получение мыши с опушенным хвостом. У мыши хвост практически голый, тогда как у белки или бурундука — пушистый. При этом вся необходимая генетическая программа закладки волосяных фолликулов у мыши есть — ее спина покрыта густой шерстью. Следовательно, существуют тканеспецифичные энхансеры, которые активируют программу роста шерсти на теле, но блокируют ее в тканях хвоста (где формируется чешуйчатая структура).
Наша цель — отработать методологию поиска таких управляющих элементов. Мы планируем сравнивать пространственно-временные профили транскриптомов и активность энхансеров в эмбриогенезе у видов с голыми и опушенными хвостами именно в момент закладки волосяных фолликулов. Выявив регуляторные переключатели, мы попробуем перенести эти контрольные точки из генома одного вида в геном мыши. Отработав подход на такой относительно простой модели, в перспективе можно будет переходить к управлению гораздо более сложными биологическими признаками.
БМ: Интересно, получится ли вокруг этой истории такая схожая медийная популярность, как это сработало у Colossal?
ПС: До этого, конечно, еще далеко. С проектом по пушистому хвосту мы только на старте: собираем образцы и начинаем секвенирование. Что касается Colossal Biosciences, когда они получили своих опушенных мышей, Интернет действительно гудел. Но, отдавая должное Джорджу Чёрчу и его команде, они проделали впечатляющую работу. Их главное достижение, до которого нам пока далеко, — методология одновременного мультиплексного редактирования десятков геномных локусов. У нас таких технологий пока нет. Они развили этот подход еще сильнее, когда создавали модель лютоволка: если не ошибаюсь, там вносили порядка тридцати генетических модификаций единовременно.
Подробнее о подвигах Джорджа Черча можно почитать в статье «Фантасты в лабораторных халатах: как безумные идеи превратились в бизнес будущего» [18].
Методы генетического редактирования продолжают активно развиваться, мы стараемся поспевать освещать их (и зачем вообще нужно уметь редактировать геном). Об одном из важнейших приложений рассказали в статье «Переписывая код жизни: как инструменты генного редактирования могут навсегда изменить медицину?» [19].
Методологически они сейчас на вершине: отработали редактирование индуцированных плюрипотентных стволовых клеток с последующим переносом ядра, а также прямое редактирование зигот. Что же касается полученных мышей, нужно признать: большинство внесенных туда мутаций уже были описаны в литературе. Собственно, из генома мамонта взяли, кажется, всего две мутации, и еще вопрос, насколько именно они определяют мамонтоподобный фенотип. Но это ничуть не умаляет их колоссальных технологических успехов.
«В науке не осталось низковисящих фруктов»: работа руками и новые реалии лаборатории
БМ: Нас часто читают студенты, и, возможно, после этого интервью кто-то из них заинтересуется вашим направлением. Расскажите, как к вам попадают студенты, магистранты, аспиранты? Откуда они приходят и как вы выстраиваете с ними работу?
ПС: По большей части мы пользуемся тем счастьем, что студенты у нас «самозарождаются». Поскольку мы учебная организация, через нас проходит огромный поток ребят. Я преподаю в МГУ и в Сколтехе, так что студенты приходят оттуда, а иногда и из совершенно неожиданных мест — из других университетов.
Признаюсь честно: мы не очень охотно берем людей со стороны на позиции аспирантов или научных сотрудников. Это всегда «кот в мешке», и далеко не каждый случай оказывается удачным. Гораздо лучше, когда студент приходит к нам на младших курсах: так мы успеваем понять, подходит ли он для нашей работы. Но это, конечно, не значит, что к нам нельзя пробиться извне — наши двери открыты.
Что бы я хотел посоветовать студентам? Когда я сам пришел в лабораторию (кстати, довольно поздно, курсе на третьем), первым делом меня поставили мыть посуду хромпиком. Полгода я вообще не занимался наукой. Хотя я был отличником и думал: «Вот сейчас я приду и начну вершить судьбы мировой науки!» — нет, меня сразу отправили к раковине. И ничего страшного не произошло, моя научная судьба сложилась вполне удачно. Только через полгода мне доверили делать проявитель и фиксаж для рентгеновской пленки, и это было просто счастье! Или, например, смешивать буфер для электрофореза.
Сегодня многие слишком спешат: студенты хотят спасти человечество прямо в рамках своей курсовой. Амбиции — это здорово. Но у меня плохие новости: если бы судьбу человечества можно было решить курсовой работой, это давно бы уже сделали. В науке не осталось «низковисящих фруктов» — простых, но глобальных проблем, которые с ходу мог бы решить вчерашний школьник. Если задачу легко решить, ее не будут оставлять до вашего прихода.
Главное, что нужно сделать в студенчестве — освоить как можно больше методов. Не гонитесь сразу за славой, сначала овладейте инструментами. Чем шире ваш методический арсенал, тем легче будет потом выбрать специализацию и в ней работать. Разумеется, это не значит, что нужно трудиться вслепую: вы обязаны понимать суть научной проблемы, знать, над чем трудится весь коллектив лаборатории. Но ваша первостепенная личная задача на старте — учиться работать руками.
Второй мой совет касается уже дальнейшего пути. У меня сложилось так, что за свою жизнь я много раз менял тематику, хотя формально оставался на одном месте: как пришел в это здание на третьем курсе, так здесь и базируюсь. Конечно, благодаря сотрудничеству мне посчастливилось поработать и в Институте Макса Планка в Берлине (с Ричардом Бримакомбом), и в нескольких американских университетах, но я всегда возвращался сюда. Однако я никогда не застревал в одной теме.
Мне физически больно смотреть на людей, которые до самой пенсии занимаются тем же, о чем писали свой диплом. Глубокая специализация — это важно, но не бойтесь осваивать новое, если чувствуете, что наука движется в другом направлении. Изучайте актуальные проблемы и новые инструменты.
Приведу пример. Когда мы решили заняться редактированием мышей, я уже был профессором, доктором наук. Но чтобы освоить эту «кухню», я пошел в Институт биологии гена к Алексею Дейкину, который формально был младше меня по званию. Меня оформили стажером без оклада, и я один день в неделю приходил учиться: как выделять яйцеклетки, как делать микроинъекции, как подсаживать эмбрионы. Профессор сидел на правах бесплатного стажера и учился делать что-то руками. В итоге научился сам, научил своих учеников, и мы наладили этот процесс здесь, в МГУ. Так что не бойтесь менять область и не стыдитесь учиться.
БМ: Здорово! А как руководитель, вы транслируете эти принципы своей команде? Может, вы переводите сотрудников из проекта в проект, чтобы они не застревали на одном месте, пробовали разные направления и осваивали новые методы?
ПС: Скорее, сама жизнь заставляет их постоянно осваивать что-то новое. Искусственно я людей не тасую: нет такого правила, что микробиолог обязан ради профилактики полгода отработать на мышах. Разумеется, я опираюсь на имеющиеся у сотрудников навыки, но логика современных исследований постоянно требует расширения методической базы.
Если честно, я немного завидую нынешним студентам и аспирантам, которые только начинают свой путь. Когда я пришел в лабораторию, мы занимались химическими сшивками. Никакой генетики в нашем арсенале не было, даже простейшего клонирования. Геном E. coli тогда еще не был расшифрован, мы работали практически вслепую. А сегодня наши студенты рутинно редактируют геномы — по-моему, это потрясающе. Инструменты, доступные современной молодежи, нам в их возрасте даже не снились. То, какой фантастический прогресс совершила наша наука всего за два-три десятилетия, не может не восхищать.
БМ: Давайте затронем тему международного научного сотрудничества. С кем и насколько активно вам сейчас удается работать?
ПС: Тема болезненная. Раньше у нас было огромное количество совместных зарубежных проектов, но сейчас объемы заметно сократились. И дело не в ограничениях с нашей стороны — некоторым западным коллегам настоятельно не рекомендуют сотрудничать с российскими институтами.
Для меня это выглядит странно. Какими бы ни были политические разногласия между странами, даже в разгар холодной войны фундаментальная наука оставалась мостом для диалога. Тем не менее, приходится принимать текущие реалии. Мы по-прежнему открыты к совместной работе, но регулярно слышим от давних партнеров: «Нам не рекомендовали продолжать контакты». Доходит до парадоксальных ситуаций, когда выпускнику МГУ за рубежом не разрешают выступить оппонентом на защите диссертации нашего аспиранта-иностранца из Зимбабве.
Тем не менее, мы продолжаем искать партнеров по всему миру, и отрадно, что многие ученые не обращают внимания на формальные запреты.
Мы выстраиваем контакты с университетами Китая — с разной степенью интенсивности, но диалог идет. Кроме того, часть наших давних западных партнеров сохраняет научные связи вопреки общей конъюнктуре. Ситуации бывают разные, но мы продолжаем работать.
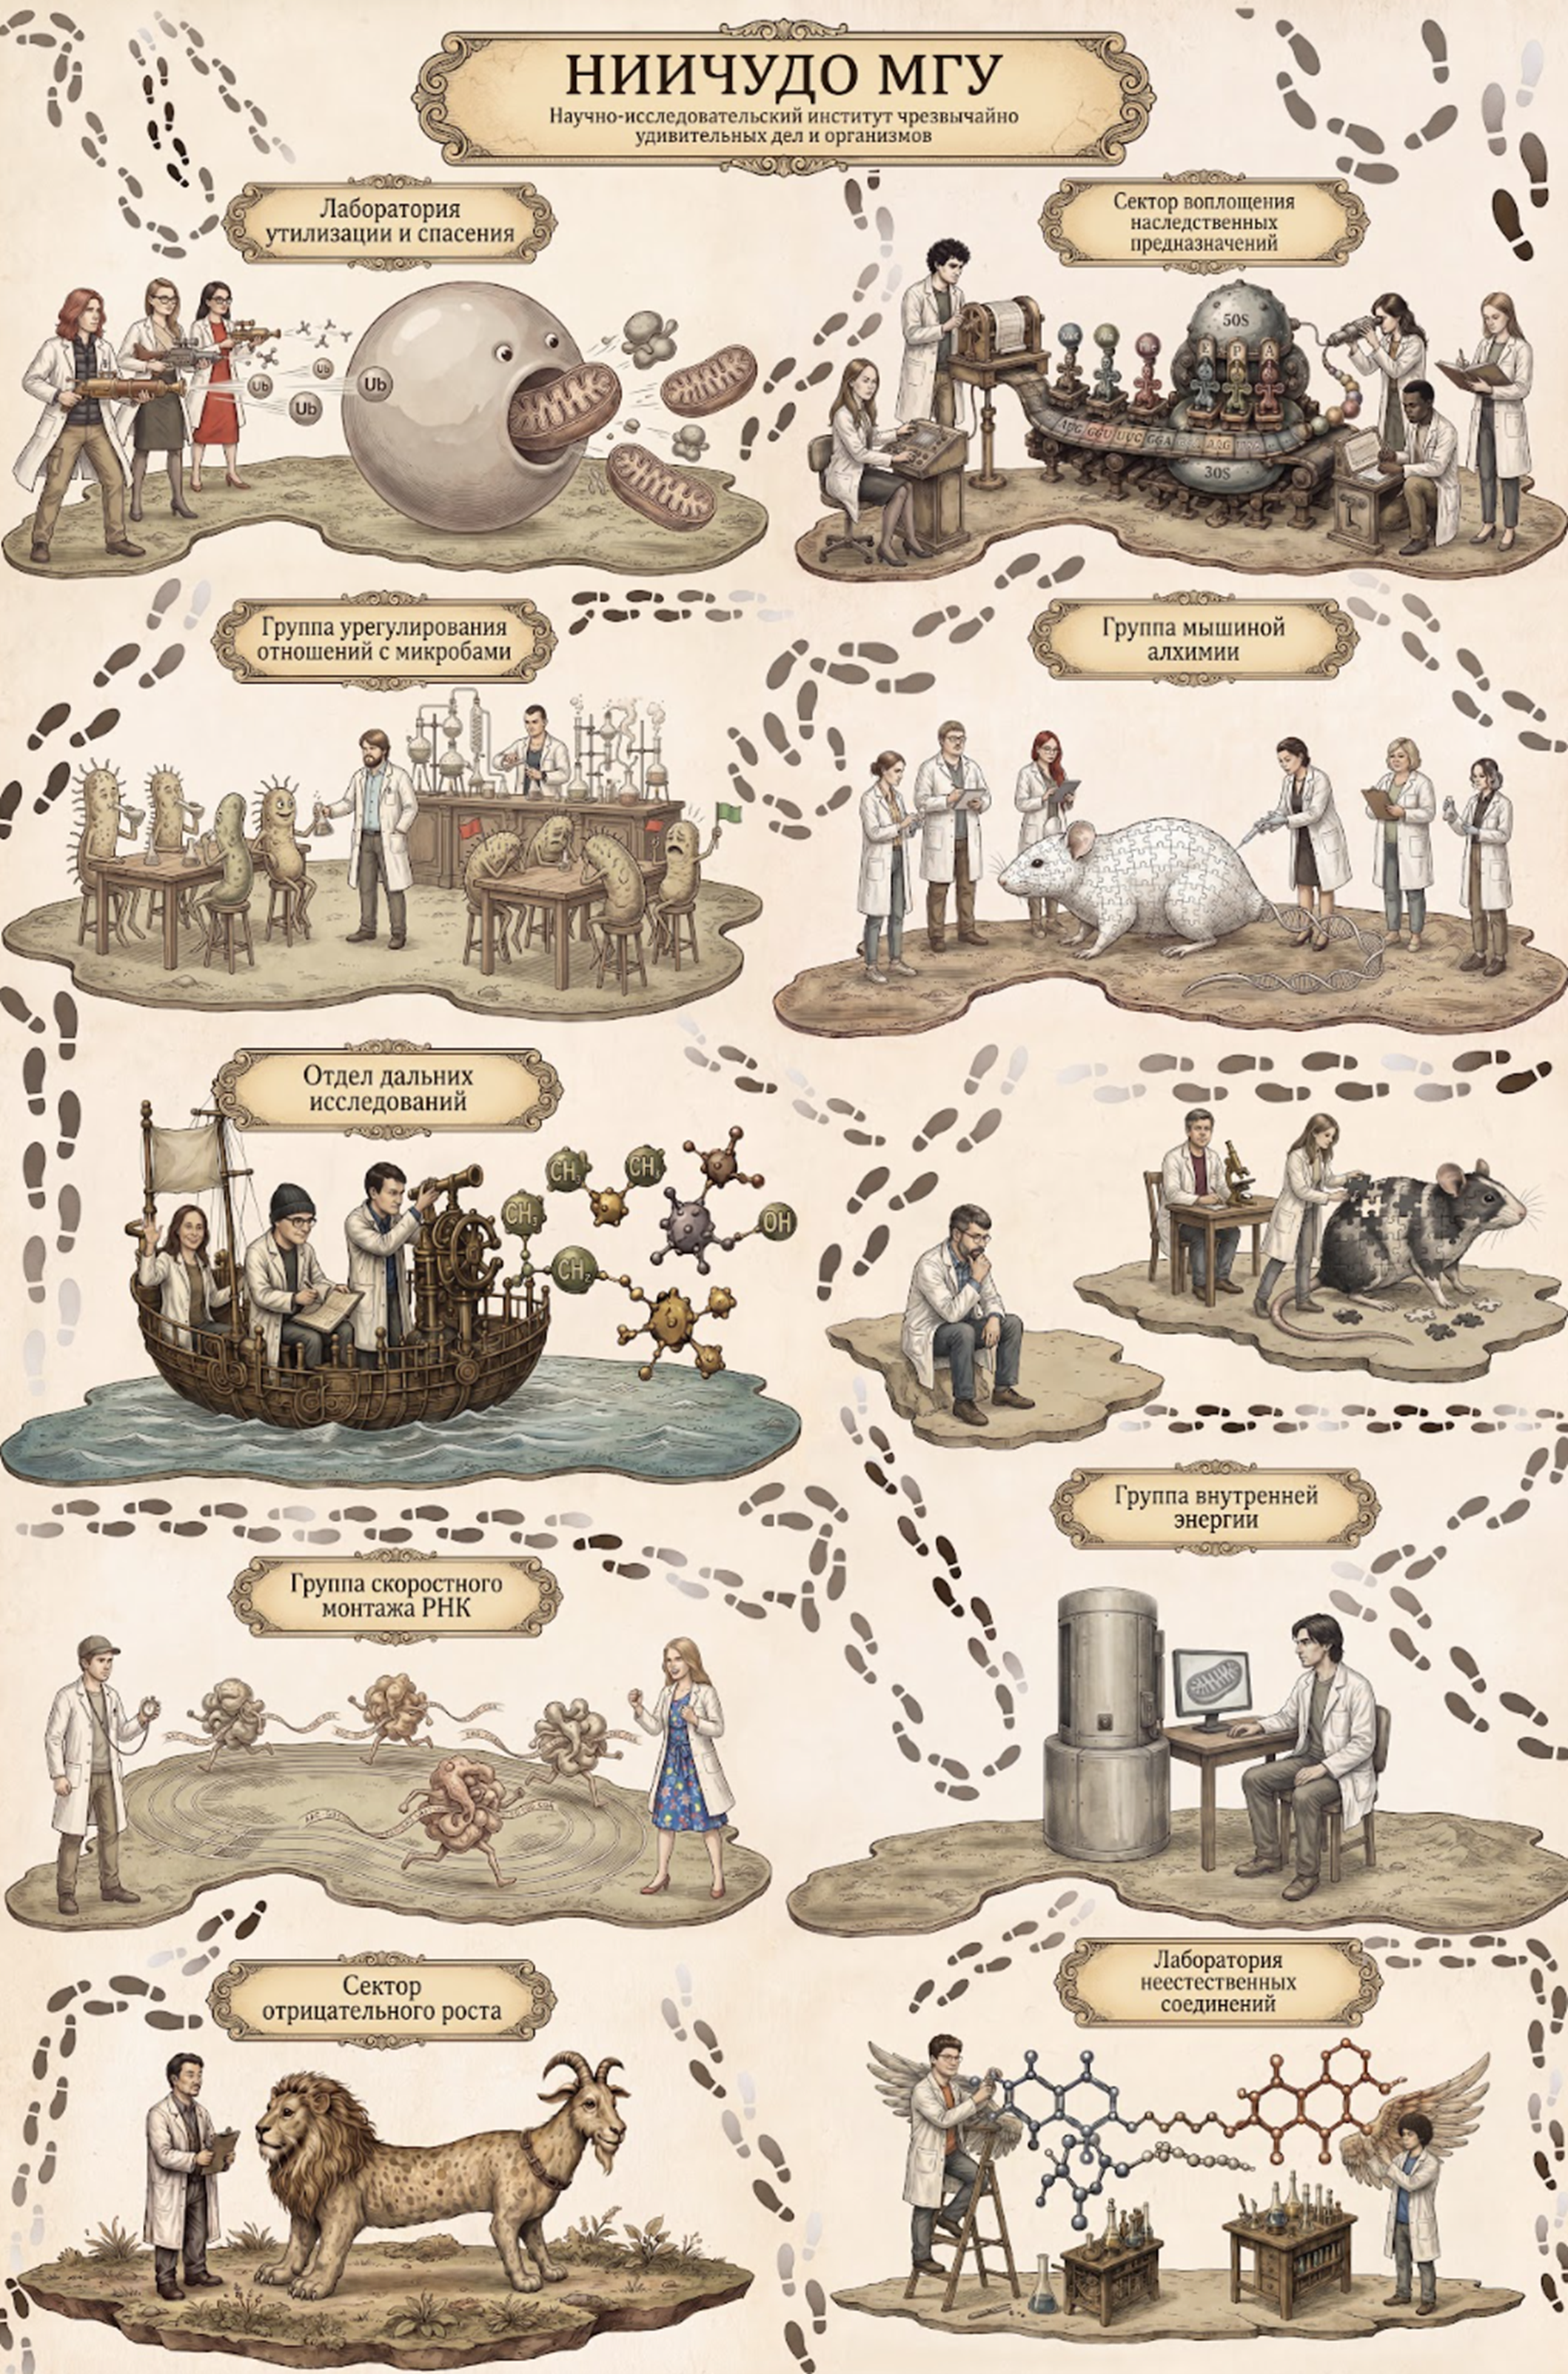
Рисунок 9. Под руководством Петра Сергиева кипит работа сразу в нескольких научных группах. Некоторые словно прямиком из научно-фантастического фильма… или из НИИЧУДО МГУ :)
личный архив Петра Сергиева
БМ: Немного отвлечемся. Дело в том, что всю нашу беседу я то и дело смотрела на плакат за вашей спиной. Что это за постер?
ПС: Да-да, это подарок на день рождения от коллег — целый настенный комикс (рис. 9)! На нем изображены все наши научные направления. В центре сижу я в задумчивости, а вокруг кипит работа: мыши, антибиотики, рибосомы, аутофагия. Сотрудники сделали такой арт — судя по всему, сгенерировали и стилизовали с помощью искусственного интеллекта, но нарисованы там вполне конкретные ребята из нашей группы, такая у нас команда.
БМ: Вышло классно! И еще один вопрос — можете назвать ваш самый любимый лабораторный прибор? Возможно, еще со студенческих времен — за которым вам больше всего нравилось работать?
ПС: Если вспоминать прошлое, наверное, ультрацентрифуга. Сейчас на меня, возможно, обидятся коллеги, работающие на суперсовременной технике, но мне почему-то всегда очень нравилось крутить рибосомы на ультрацентрифуге. Наверное, это ностальгия по тем временам — ведь дело было еще в прошлом веке! Удивительно, как стремительно меняется методический ландшафт. Многое из того, что мы рутинно делали во время работы над дипломом и кандидатской, сегодня уже отходит на второй план. Конечно, центрифугирование для препаративного выделения рибосом используется до сих пор. Но другие методики уступили место более точным альтернативам — и это к лучшему. Раньше мы сотнями ставили пластинки для тонкослойной хроматографии (ТСХ), а сейчас аналогичные задачи гораздо эффективнее решает масс-спектрометрия (хотя ТСХ кое-где все еще находит применение). Про современные технологии секвенирования и говорить не приходится.
«Биология переходит в технологическую плоскость»: синтетическая эволюция, сенсоры для лекарств и расчистка клеточного мусора
БМ: Давайте заглянем вперед: что из того, что сегодня кажется невозможным, через двадцать лет станет привычной практикой? Например, мультиплексное редактирование множества генов одновременно или что-то подобное?
ПС: Я абсолютно убежден, что так и будет. Посмотрим на историю науки. В первой половине и середине XX века произошел колоссальный взлет фундаментальной физики — блестящие теоретические и экспериментальные работы. Спустя примерно полвека этот фундамент вылился в привычный нам технологический уклад: космические полеты, современные микропроцессоры, смартфоны и видеосвязь, о которой в прошлом веке трудно было даже мечтать.
Убежден, что с биологией происходит ровно то же самое. Ее современный этап ведет отсчет от открытий Уотсона и Крика, а пик накопления фундаментальных знаний пришелся на вторую половину и конец XX века. Сейчас биология стремительно переходит в технологическую плоскость. Сегодня в ходу такие термины, как синтетическая биология , биотехнологии, биоэкономика.
О некоторых аспектах синтетической биологии, в частности, об использовании языковых моделей в структурной биологии мы рассказали в рамках спецпроекта «Искусственный интеллект в биологии», например, в статье «Как языковые модели покорили мир белков» [20].
Главное преимущество биотехнологий — самовоспроизводство. Если однажды вложить ресурсы и создать организм с заданными свойствами, дальше биологическая система будет размножаться сама и выполнять заложенную программу. Это колоссальный стимул: инвестировать один раз, а затем масштабировать результат. Поэтому мы неизбежно вступаем в эпоху синтетической биологии и создания организмов с принципиально новыми свойствами. Для этого как раз потребуется освоить надежную методологию переноса сложных полигенных признаков.
Применимо ли это к человеку? Тема острая и дискуссионная: этично ли вмешиваться в геном человека, не навредим ли мы? Мое отношение к этому предельно прагматично. Сейчас редактировать геном человека не стоит не из абстрактного страха перед рисками, а потому, что соотношение потенциальной пользы к этим рискам пока не в нашу пользу. Мы еще не научились радикально улучшать биологию человека на молекулярном уровне.
Но как только появится гарантированная возможность избавить будущие поколения от онкологических заболеваний, адаптировать организм к сверхглубоководным погружениям или ввести человека в длительный анабиоз для межзвездных перелетов — технологии немедленно пойдут в ход. Пока же эти технологии сырые, вмешиваться в геном человека преждевременно; нужно на фундаментальном уровне отработать логику управления сложными признаками.
Второе магистральное направление будущего — интерфейсы «мозг–компьютер» [21], [22]. Пока эта область при всех впечатляющих успехах практически не использует потенциал генетики, хотя будущее лежит именно на стыке дисциплин. Нейроны можно запрограммировать так, чтобы они сами формировали управляемый контакт с электронными устройствами. Звучит несколько футуристично, но в этом нет ничего фантастического. Оптогенетика уже существует и активно развивается [23].
Сегодня электроника взаимодействует скорее с отдельными зонами коры, но в перспективе ученые смогут создавать точечные биогибридные контакты — так называемые нейроморфные синапсы. Если нейрон будет напрямую связываться с микроэлектродом или микросветодиодом, пропускная способность нейроинтерфейсов вырастет на порядки, тогда как сейчас объем передаваемых данных сильно ограничен.
Кого-то такие перспективы пугают, кого-то вдохновляют, но будущее неизбежно. Здесь работает базовый эволюционный принцип: любая технология, дающая человеку адаптивное преимущество, в конечном счете закрепится и победит.
БМ: Мы подробно обсудили генетически модифицированных мышей и модификации РНК, но совсем немного затронули антибиотики — еще одну важную и заметную область вашей работы. В вашей лаборатории создана двухкомпонентная репортерная система для поиска и изучения антибиотиков, действующих на рибосому. Расскажите, как она устроена и как помогла, например, в исследовании амикумацина А?
ПС: Как ни удивительно, история создания этого репортера тоже началась с изучения метилтрансфераз. Когда мы исследовали их функции, мы обратили внимание на два фермента, модифицирующих декодирующий центр малой рибосомной субчастицы — участок, где связывается тРНК (в частности, в А-сайте). Выключив эти гены, мы зафиксировали неожиданный эффект: у бактерий резко усилилась экспрессия триптофанового оперона.
Стали разбираться в причинах. Экспрессия триптофанового оперона регулируется аттенюацией — соотношением скоростей движения рибосомы и РНК-полимеразы. Если клетке не хватает триптофана, рибосома замедляется на лидерном участке РНК, содержащем тандемные триптофановые кодоны. Полимераза же продолжает синтез с обычной скоростью. Это рассогласование запускает переключение вторичной структуры РНК и открывает транскрипцию всего оперона.
Мы поняли, что из-за нехватки метильных групп рибосомы двигаются медленнее, и даже этого небольшого торможения оказалось достаточно, чтобы триптофановый сенсор сработал. Отсюда родилась идея: если уж дефицит модификаций так заметен, то антибиотики, ингибирующие трансляцию, не просто замедлят рибосому, а полностью ее застопорят — сенсор гарантированно их «поймает».
Первую версию системы на основе люцифераз разработала Ирина Прохорова в рамках подготовки кандидатской диссертации по метилтрансферазам [24]. Затем Илья Остерман развил технологию и создал два следующих поколения репортеров, довел конструкцию до высокой чувствительности. Чтобы система не реагировала на реальный уровень аминокислот в среде, мы убрали регуляторные триптофановые кодоны, заменив их аланиновыми. В итоге сенсор стал откликаться исключительно на жесткие воздействия, стопорящие трансляцию, — то есть на антибиотики. Вместо структурных генов самого оперона мы поместили ген флуоресцентного белка.
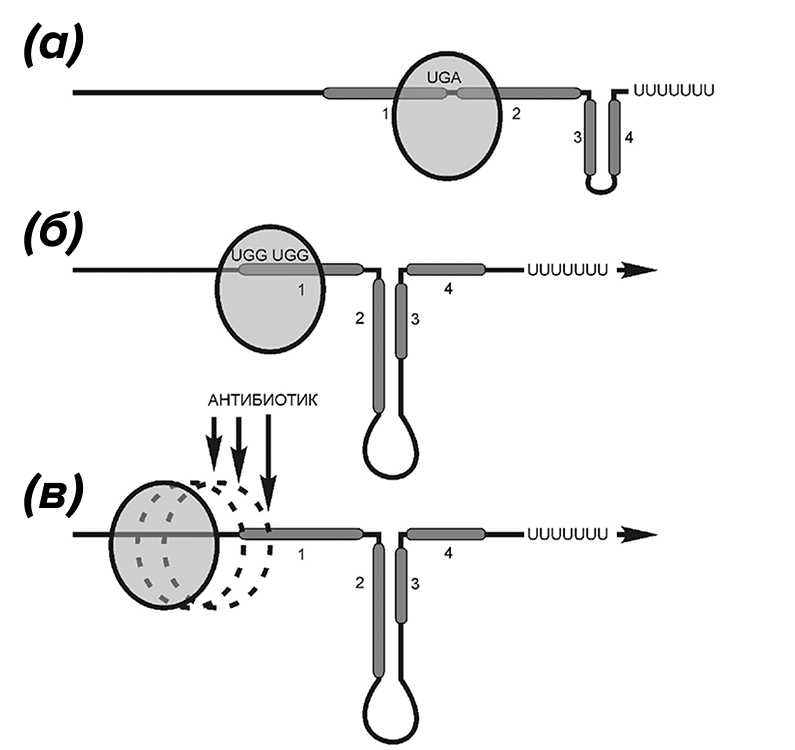
Рисунок 10. Принцип работы репортёрной системы для выявления ингибиторов трансляции. Схематично показано действие антибиотика на бактериальную рибосому и работу репортерной конструкции на основе триптофанового аттенюатора. (а–в) — отсутствие антибиотика рибосома транслирует лидерную последовательность, и РНК формирует структуру, препятствующую считыванию репортерного гена. (б) — при остановке трансляции на кодонах триптофана (UGG) под действием антибиотика меняется укладка РНК, что позволяет транскрибировать и экспрессировать репортерный ген. (в) — антибиотик нарушает работу рибосомы, вызывая изменение структуры аттенюатора и включение репортерного сигнала. Такая система позволяет обнаруживать соединения, подавляющие синтез белка, по изменению флуоресценции бактериальных клеток.
В дополнение мы ввели второй сенсор на основе промотора SOS-ответа, реагирующий на повреждения ДНК. Этот клеточный путь хорошо известен, и на него завязано действие целого ряда антибактериальных препаратов — например, фторхинолонов, ингибирующих бактериальную ДНК-гиразу.
Получилась удобная двухцветная сенсорная система (рис. 10) [25]: бактериальная клетка при воздействии тестируемого вещества начинает флуоресцировать определенным цветом в зависимости от механизма повреждения — нарушен ли биосинтез белка или повреждена ДНК.
С помощью этой платформы мы протестировали сотни тысяч химических молекул и тысячи природных экстрактов, выявив целый ряд перспективных антибиотиков. Ее главное преимущество — экспресс-анализ: капнув вещество на газон бактерий, мы не просто фиксируем зону подавления роста, но сразу видим первичный молекулярный механизм действия. Так нам удалось пересмотреть механизм работы нескольких полузабытых антибиотиков, исследованных еще в 1970-е годы (тогда из-за несовершенства методов исследователи нередко ошибались с их мишенями), а также расшифровать механизм ряда принципиально новых соединений.
Правда, похвастаться тем, что многие из них уже завтра войдут в клиническую практику, пока нельзя. Главный барьер — высокая цитотоксичность. Многие соединения крайне интересны с фундаментальной точки зрения и обладают уникальными механизмами действия, но оказываются токсичными для клеток млекопитающих. Кроме того, ряд природных антибиотиков работает лишь против узкого круга близкородственных штаммов в своей естественной экологической нише, а против клинически значимых патогенов неэффективен.
Тем не менее, это необходимый задел: всегда остается путь химической модификации. Классические антибиотики 1950–70-х годов также прошли многократную оптимизацию химиками, и современное здравоохранение держится на полусинтетических производных нескольких поколений.
У меня даже есть одна полуфантастическая мысль — на случай не самого радужного сценария, когда антибиотикорезистентность полностью обесценит наш арсенал. Если человечество столкнется с пандемиями уровня средневековой чумы, а все классические антибиотики откажут, можно ли будет использовать заведомо токсичные для человека препараты? Например, с помощью геномного редактирования превентивно встроить человеку ген устойчивости к конкретному цитотоксичному антибиотику, сделав наши клетки невосприимчивыми к нему. Тогда инфекцию можно будет выжигать мощным препаратом без риска для пациента. Пока это звучит безумно, но лет через пятьдесят на фоне тотальной устойчивости супербактерий такой подход вполне может перестать казаться научной фантастикой.
БМ: Вы также переводите свои исследования в плоскость изучения долголетия. Какая связь между рибосомными модификациями и этой областью? Как произошел переход и какие проекты ведутся сейчас?
ПС: Откровенно говоря, никакой прямой связи между метилированием рибосом и долголетием нет. Переход произошел иначе. Сейчас стало очевидно, что наука должна давать практический выход. Звучит тривиально, но на первом заседании трудового коллектива в этом году я напомнил коллегам известную мысль Льва Ландау: ученые всегда должны помнить, что они живут за счет средств общества, наука — дело дорогостоящее, и заниматься ею имеют право лишь те, кто приносит реальную пользу.
Однако здесь возникает серьезная системная проблема. Когда ученым, десятилетиями занимавшимся исключительно академическими изысканиями, директивно спускают требование работать на практику, нередко начинается откровенная профанация. Меня это искренне возмущает.
Фундаментальная наука исследует устройство мира. Она не обязана иметь сиюминутное прикладное применение. Я часто привожу в пример открытие системы CRISPR/Cas: если бы финансирование выделяли строго под геномное редактирование, CRISPR никогда бы не открыли — ведь начиналось все с изучения странных повторов в геноме бактерий, интерес к которым казался чисто умозрительным. Фундаментальная логика идет от непознанного: есть «белое пятно» — мы его изучаем.
Прикладная логика совершенно иная: она идет от конкретной практической, медицинской или технологической проблемы, которую необходимо решить. Самое худшее в науке — имитация прикладного процесса. Это происходит, когда исследователи всю жизнь занимаются одной узкой темой со студенческой скамьи до пенсии, а затем пытаются притянуть ее за уши к громкой повестке: «Если мы повернем нашу работу вот так, это наверняка решит мировую проблему!». В итоге изобретаются инструменты, которые никогда не найдут применения. Это убивает фундаментальный поиск и не дает никакого прикладного эффекта. Науку нужно четко разделять не по методам, а по целеполаганию: поиск неизвестного либо решение конкретной задачи. Попытки скрестить их искусственно почти всегда нежизнеспособны.
Проект по долголетию — пример органичной прикладной задачи . Инициатива исходила от индустриального партнера — ГК «ЭФКО». Было очень приятно увидеть, что крупный бизнес из реального сектора готов вкладываться в серьезные научные исследования. Они сформулировали задачу и обеспечили софинансирование на паритетных началах с Минобрнауки. Проблема показалась нам научно состоятельной и крайне интересной, и мы взялись за нее, несмотря на то, что с метилтрансферазами она никак не связана.
Подробнее о том, что исследуют в области старения в НИИ физико-химической биологии имени А. Н. Белозерского рассказал Сергей Дмитриев в видеоинтервью «Синтез белка, коварные вирусы и транскриптомные часы старения — как выжить в такой науке» [26] серии «СуперЛаба».
В основе проекта лежит регуляция аутофагии . Это внутриклеточный процесс утилизации поврежденных молекулярных комплексов и органелл. Аутофагия перерабатывает их на «вторсырье» — мономеры и аминокислоты, которые клетка либо окисляет для получения энергии, либо использует как строительный материал. Этот механизм активируется при поломках или при клеточном голодании, когда нужно пустить в расход второстепенные компоненты ради выживания.
Об аутофагии (а заодно и протофагии) рассказал Петр Старокадомский в статье «Аутофагия, протофагия и остальные» [27].
С возрастом интенсивность аутофагии снижается, и в цитоплазме начинает накапливаться молекулярный мусор. Это критично для неделящихся клеток: если в делящихся популяциях балласт разбавляется при клеточных делениях (там на первый план выходит риск накопления мутаций и онкогенеза), то в неделящихся клетках — прежде всего в нейронах — мусор оседает безвозвратно. Неслучайно многие нейродегенеративные заболевания напрямую ассоциированы с внутриклеточными белковыми агрегатами.
Идея в том, чтобы с помощью экзогенных активаторов аутофагии стимулировать «расчистку авгиевых конюшен» в долгоживущих клетках. Это не панацея и не способ достичь абсолютного бессмертия: старение многофакторно, и, например, против накопления мутаций в геноме аутофагия бессильна. Но как терапевтический инструмент для снижения токсической нагрузки на неделящиеся ткани это крайне перспективно.
Мы занялись поиском активаторов аутофагии (рис. 11). Помимо стандартных синтетических библиотек, мы обратились к природным источникам. Протестировали практически весь ассортимент крупной аптечной сети лекарственных трав — более трехсот экстрактов. Мой предыдущий опыт с антибиотиками подсказывал, что активные молекулы встречаются редко, но здесь результат превзошел ожидания: выраженную активацию аутофагии показал едва ли не каждый второй фитоэкстракт.
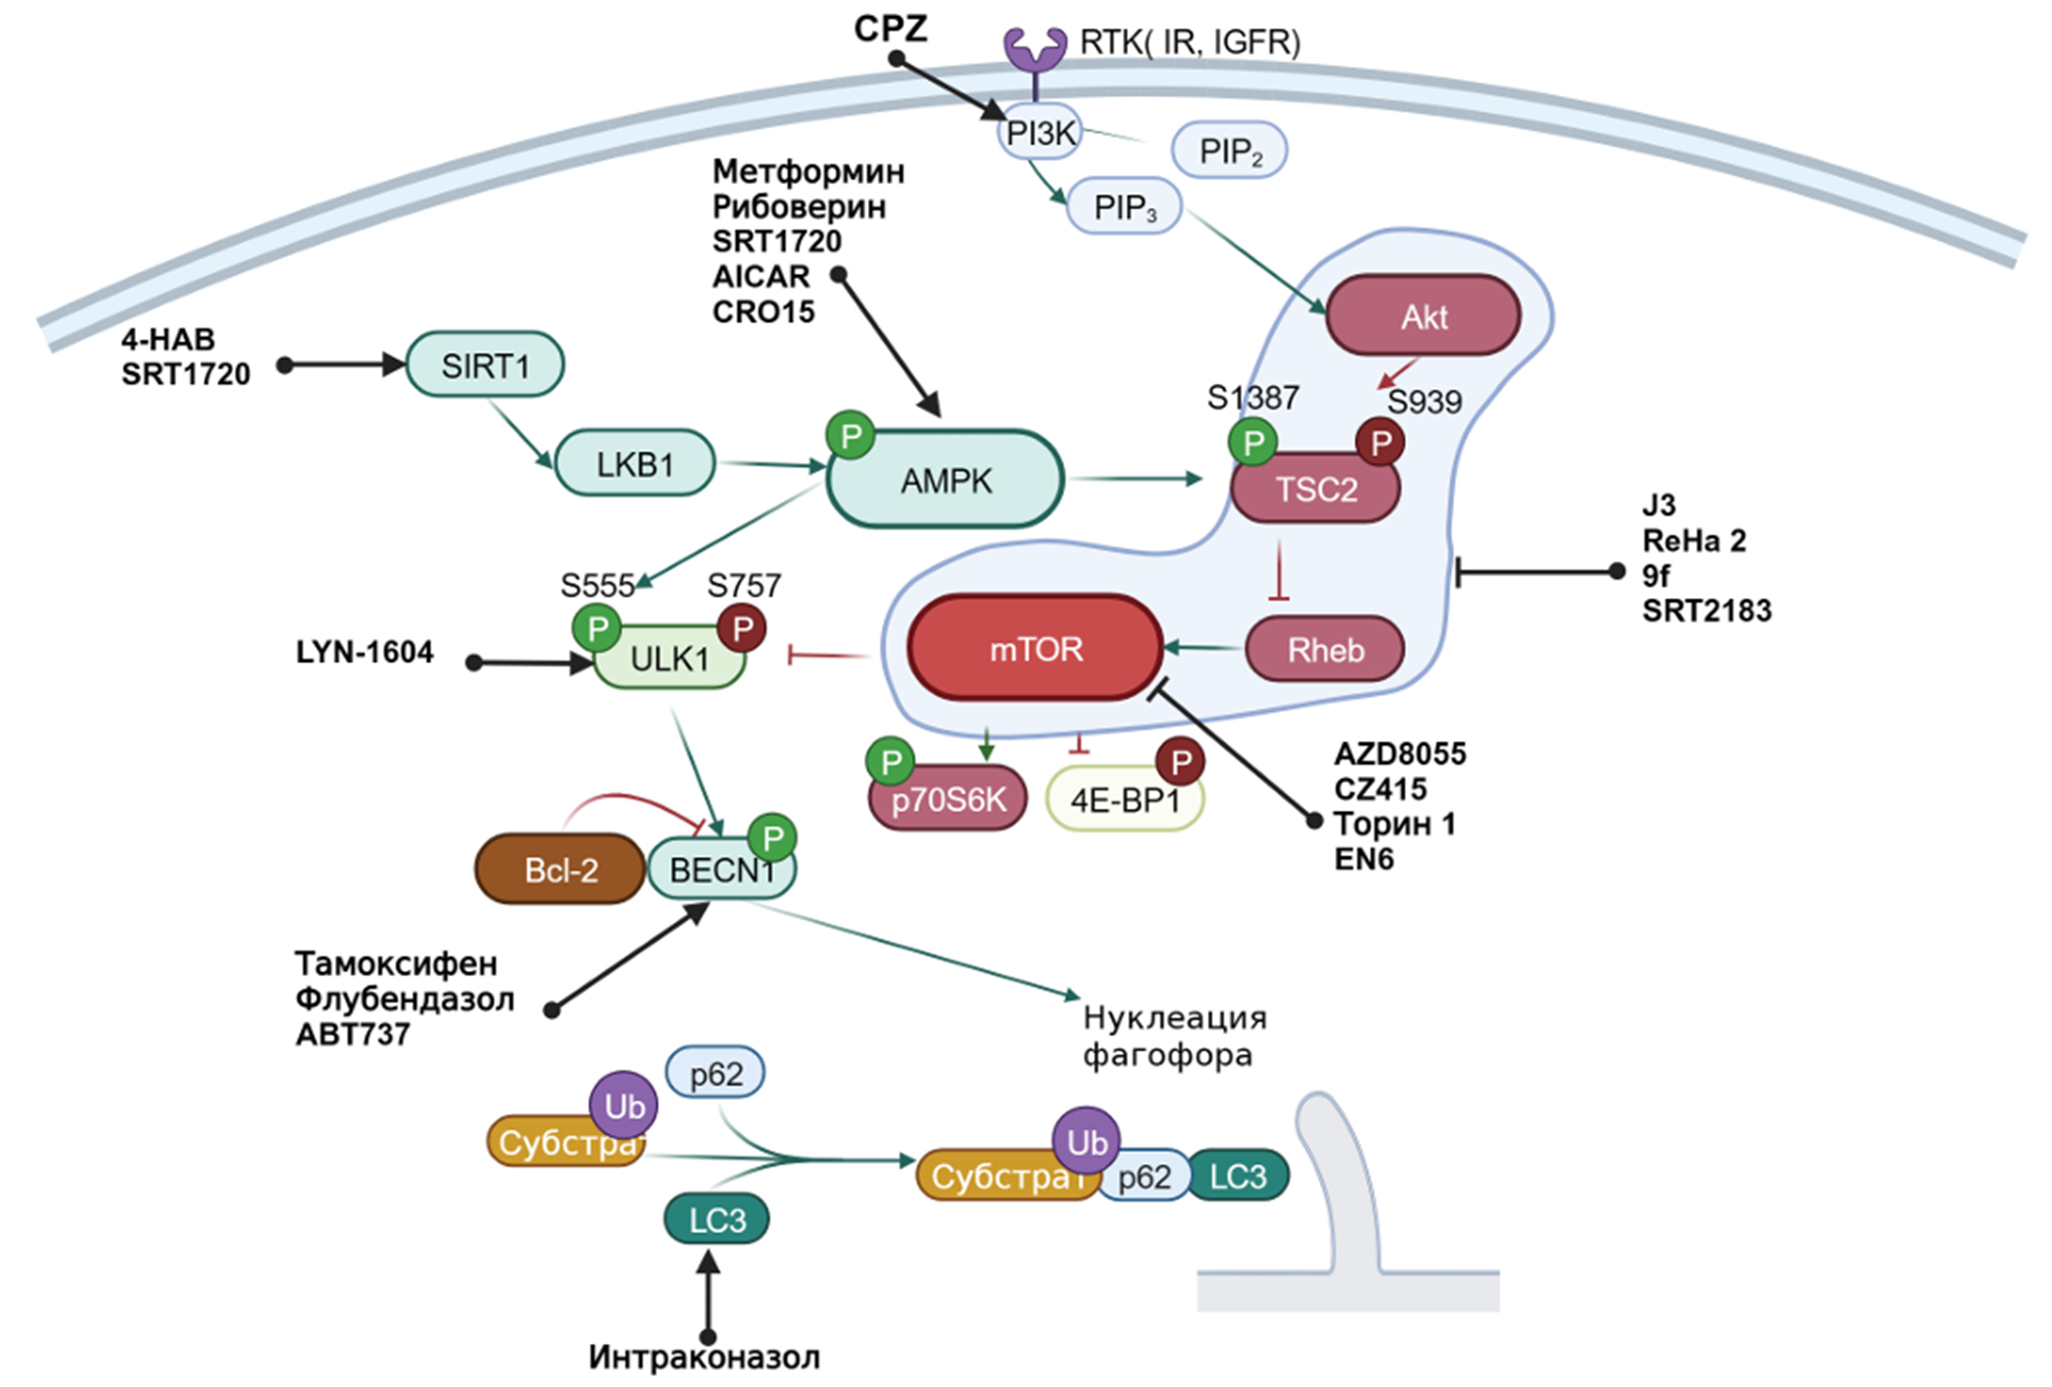
Рисунок 11. Регуляция аутофагии по mTOR-зависимому и mTOR-независимому путям под действием синтетических активаторов. На схеме представлены ключевые внутриклеточные каскады (сигнальные пути PI3K/Akt, комплексы mTOR, AMPK, киназа ULK1 и комплекс BECN1), контролирующие процесс аутофагии, а также точки приложения изученных регуляторных соединений. Условные обозначения: Ub — убиквитинирование, P — фосфорилирование (℗ ингибирующее и ℗ активирующее); черные стрелки указывают на мишени действия активаторов аутофагии; в самом каскаде зеленые стрелки обозначают активирующее влияние белков, а красные — подавляющее.
С помощью хроматографии и масс-спектрометрии мы очистили активные фракции, идентифицировали соединения и перешли к доклиническим испытаниям на животных. Мы тестируем молекулы на разных мышиных моделях:
- ненаследственные модели старения и метаболических нарушений (возрастные мыши и животные на высокожировой диете);
- генетические модели ожирения с нокаутом гена лептина или его рецептора (лептин сигнализирует мозгу о насыщении; без него животные непрерывно едят и стремительно набирают вес);
- модели бокового амиотрофического склероза (БАС), созданные совместно с Белгородским государственным университетом, куда перешел Алексей Дейкин.
Исследования продолжаются, но уже выделен ряд перспективных соединений, проходящих проверку in vivo.
БМ: Вспоминается история, когда в растении традиционной китайской медицины обнаружили природный активатор теломеразы и попытались построить вокруг этого многомиллионный бизнес, хотя спустя годы прорывного эффекта так и не последовало.
ПС: Я не верю в существование единственной «таблетки от старости», которая волшебным образом снимет все проблемы. Старение складывается из множества независимых патологических процессов. Продолжительность жизни человечества растет поэтапно: мы последовательно находим терапию для конкретных заболеваний, снижаем сопутствующие риски, и за счет этой суммы побед интегральный показатель сдвигается вверх.
Однако, как сторонник генетических технологий, я убежден: радикальный сдвиг в продлении активного долголетия станет возможным лишь тогда, когда мы научимся вмешиваться в геном. Все эффекты, которых мы пытаемся добиться с помощью фармакологии — в том числе модуляция активности той же теломеразы, — на генетическом уровне можно реализовать значительно точнее и эффективнее.
Литература
- Чего вы не знаете о рибосоме...;
- Служба заботы о рибосомах. Как клетка следит за качеством своих молекулярных машин;
- Обо всех РНК на свете, больших и малых;
- РНК-терапия: новая глава в истории медицины;
- Zhipeng Lu, Qiangfeng Cliff Zhang, Byron Lee, Ryan A. Flynn, Martin A. Smith, et. al.. (2016). RNA Duplex Map in Living Cells Reveals Higher-Order Transcriptome Structure. Cell. 165, 1267-1279;
- Загадочное путешествие некодирующей РНК Xist по X-хромосоме;
- 12 методов в картинках: структурная биология;
- Maxim S. Svetlov, Egor A. Syroegin, Elena V. Aleksandrova, Gemma C. Atkinson, Steven T. Gregory, et. al.. (2021). Structure of Erm-modified 70S ribosome reveals the mechanism of macrolide resistance. Nat Chem Biol. 17, 412-420;
- Микробиологические войны: чем бактерии воюют друг с другом;
- Petr V Sergiev, Nikolay A Aleksashin, Anastasia A Chugunova, Yury S Polikanov, Olga A Dontsova. (2018). Structural and evolutionary insights into ribosomal RNA methylation. Nat Chem Biol. 14, 226-235;
- ДНК в трех измерениях: как сибирские ученые изучают архитектуру генома;
- Ivan Laptev, Ekaterina Shvetsova, Sergey Levitskii, Marina Serebryakova, Maria Rubtsova, et. al.. (2020). METTL15 interacts with the assembly intermediate of murine mitochondrial small ribosomal subunit to form m4C840 12S rRNA residue. Nucleic Acids Research. 48, 8022-8034;
- Yuzuru Itoh, Anas Khawaja, Ivan Laptev, Miriam Cipullo, Ilian Atanassov, et. al.. (2022). Mechanism of mitoribosomal small subunit biogenesis and preinitiation. Nature. 606, 603-608;
- Трансгенные животные и современная медицина: сломать, чтобы починить;
- Кодирующие некодирующие РНК;
- Anastasia Chugunova, Elizaveta Loseva, Pavel Mazin, Aleksandra Mitina, Tsimafei Navalayeu, et. al.. (2019). LINC00116 codes for a mitochondrial peptide linking respiration and lipid metabolism. Proc. Natl. Acad. Sci. U.S.A.. 116, 4940-4945;
- Новый взгляд на геном: не просто цепочка генов, а трехмерная сеть, интегрирующая функциональные домены ядра;
- Фантасты в лабораторных халатах: как безумные идеи превратились в бизнес будущего;
- Переписывая код жизни: как инструменты генного редактирования могут навсегда изменить медицину?;
- Как языковые модели покорили мир белков;
- Нейроинтерфейсы и чтение мыслей. Способен ли «Призрак в доспехах» стать реальностью?;
- Борьба мозга с нейроинтерфейсами. Что мешает нам попасть в киберпанк?;
- Нобелевская премия по физиологии и медицине 2026: куда приводит интерес к водорослям (спойлер: к оптогенетике);
- Прохорова И.В. Изучение функциональной роли метилирования G966/C967 16S PPHK Escherichia coli: дис. ... канд. хим. наук. — Москва, 2012. — 120 с.;
- P.V. Sergiev, I.A. Osterman, A.Ya. Golovina, I.G. Laptev, P.I. Pletnev, et. al.. (2016). Application of reporter strains for new antibiotic screening. BIOMED KHIM. 62, 117-123;
- Синтез белка, коварные вирусы и транскриптомные часы старения — как выжить в такой науке;
- Аутофагия, протофагия и остальные;
- Гусева Е. А., Павлова Ю. А., Донцова О. А., Сергиев П.В. (2024). Синтетические активаторы аутофагии. Биохимия. 89, 33–60.


Комментарии
0Чтобы оставить комментарий, необходимо
войти